
 五度妙笔
 企业透视镜
 API商城

 数据库
Sci Adv:周菁/王晓虹/彭琴团队合作揭示分子伴侣HSP27调控机械力敏感受体DDR1相分离与相变的新机制
内皮细胞(EC)机械感知对于
血管
稳态和动脉粥样硬化发展至关重要,尽管血流模式对EC信号传导的影响尚未被完全理解。盘状结构域受体1(DDR1)——一种酪氨酸激酶受体——充当将剪切力与内皮应答相连接的机械传感器。动脉粥样硬化保护性层流剪切流诱导快速、瞬时的DDR1激活和通过液-液相分离的凝聚,而无有害效应,而动脉粥样硬化性剪切导致延迟、持续的凝聚,导致Yes相关蛋白(YAP)激活及下游病理性信号传导。
2026年8月14日,北京大学周菁,天津医科大学王晓虹和深圳湾实验室彭琴共同通讯在
Science Advances
在线发表题为
“HSP27 regulates force-coordinated DDR1 condensate disassembly and liquid-to-gel phase transition”
的研究论文。该研究显示热休克蛋白27(HSP27)调控剪切依赖的DDR1凝聚和相变。具体而言,由各自结构域介导的DDR1与HSP27之间的相互作用对于DDR1凝聚体解组装至关重要。动脉粥样硬化性剪切与动脉粥样硬化保护性剪切不同,触发延长的DDR1介导的HSP27磷酸化,促进DDR1凝胶转变并激活YAP信号。DDR1-HSP27轴是体内内皮YAP激活和动脉粥样硬化发生的关键。靶向该通路可能为预防内皮
功能障碍
和动脉粥样硬化提供治疗潜力。
血管内皮细胞(ECs)排列于血管内表面,持续暴露于血流的摩擦力,即壁剪切应力。剪切应力的生物学效应可以是有害的或有益的,取决于由血管几何形状决定的流动模式。层流——以高且单向的剪切应力(脉动剪切或层流剪切,PS或LS)为特征——通常出现在动脉的直部。这种流动模式促进EC沿流动方向排列,并支持抗炎和抗动脉粥样硬化的内皮表型。相反,扰动流——以低且往复的剪切应力(振荡剪切,OS)为特征——发生在动脉分支和弯曲处,触发EC中的促炎反应并增加内皮通透性,可导致动脉粥样硬化。因此,不同的血流模式显著影响内皮是倾向于还是受保护免于动脉粥样硬化和相关心
血管疾病
。
引发细胞对剪切流应答的第一步是感知这些力。在血管壁细胞表达的各种机械感知和机械响应分子中,胶原受体盘状结构域受体1(DDR1)最近被鉴定为关键的机械感知酪氨酸激酶受体(TKR)。作者先前的研究表明,由血管平滑肌细胞表达的DDR1经历基质刚度或配体结合诱导的液-液相分离(LLPS)以形成称为生物分子凝聚体的无膜细胞器,从而激活Yes相关蛋白(YAP)信号通路。此外,作者显示DDR1通过其与支架蛋白14-3-3ε(YWHAE)的相互作用,对于将剪切力与EC中YAP激活相连接至关重要。DDR1的结构包括N端胞外球状盘状(DS)结构域和DS样结构域、胞外近膜(JM)区、跨膜螺旋、胞质JM区和C端酪氨酸激酶结构域。
DDR1通常以生物合成期间形成的稳定的、非共价连接的二聚体存在。暴露于剪切流通过相邻受体DS样结构域中半胱氨酸残基之间的二硫键形成诱导受体寡聚化和聚集,随后是胞质酪氨酸残基的自身磷酸化。该过程触发DDR1的LLPS及其与YWHAE的共凝聚,从而减弱YAP与YWHAE之间的相互作用,并最终抑制YAP的胞质滞留。值得注意的是,DDR1的凝聚随流动模式而变化:动脉粥样硬化保护性PS诱导快速且瞬时的凝聚而不损害EC功能,而动脉粥样硬化性OS触发延迟但持续的凝聚,可能导致扰动流的不良效应。然而,流动模式特异性DDR1凝聚背后的机制仍然难以捉摸。对不同剪切模式调控DDR1的时空控制的更深入理解可能为靶向动脉粥样硬化预防和治疗中的机械感知通路揭示新的病理学见解和治疗机会。
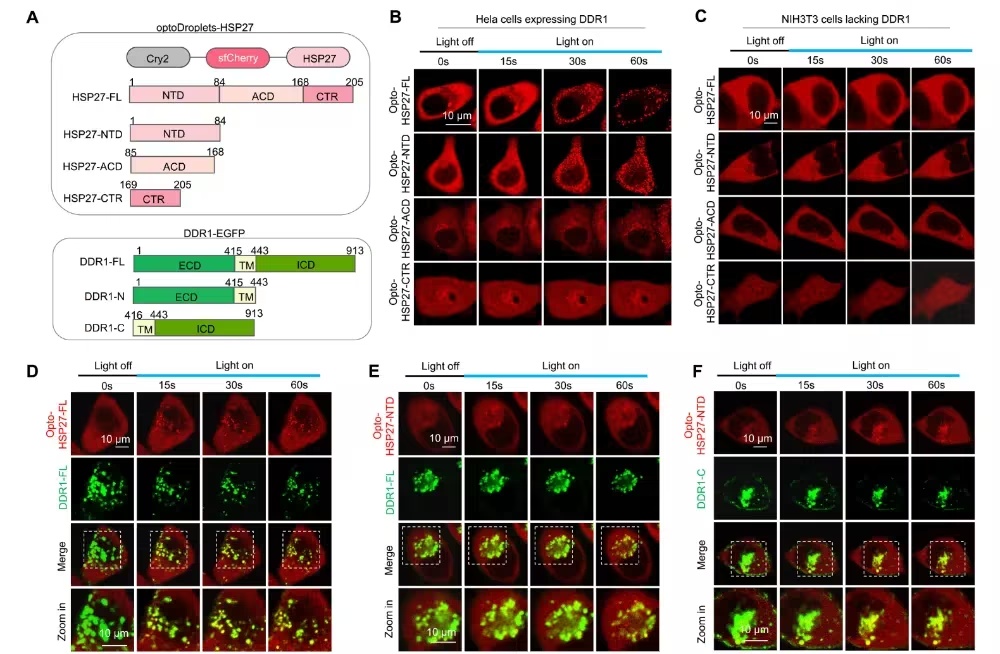
图1.DDR1和HSP27之间的相互作用和共缩聚是由DDR1的胞内结构域和HSP27的N端结构域介导的(摘自
Science Advances
)
以液态性质为特征的生物分子凝聚体表现出与周围环境的动态组分交换,从而实现精确调控的形成和解组装。该过程可能由分子伴侣调控——传统上已知用于防止蛋白质错误折叠和凝聚,但日益被确认为LLPS的关键调控因子。多种伴侣蛋白,如热休克蛋白HSP20、HSP27、HSP60、HSP70和HSP90,已被牵涉于内皮失调和血管疾病的发病机制中。HSP27(亦称HSPB1)是一种普遍存在的小热休克蛋白,存在于胞质和细胞核中。它由一个疏水N端结构域(NTD)、一个高度保守的α-晶状体蛋白结构域(ACD)和一个柔性C端结构域(CTD)组成。先前研究表明HSP27具有强效伴侣活性,防止肉瘤融合蛋白(FUS)和反式激活反应DNA结合蛋白43 kDa(TDP-43)等蛋白经历LLPS,并且是FUS或TDP-43液态凝聚体解组装所必需的。
HSP27可在其NTD响应氧化应激而被磷酸化,且该磷酸化由多种蛋白激酶催化,包括丝裂原活化蛋白激酶(MAPKs)、蛋白激酶C(PKC)β和蛋白激酶D(PKD)。HSP27的磷酸化维持其伴侣蛋白的流动性,从而防止其相变从液态转变为凝胶态。液-凝胶转变反映了动态凝聚体逐渐固化为粘弹性或刚性凝聚体,其特征为分子动力学降低、内部粘度升高和交换速率降低——这些特征常与细胞功能障碍和疾病相关。值得注意的是,对猪
主动脉
扰动流(动脉粥样硬化易感)与层流(动脉粥样硬化抵抗)区域天然内皮的规模化磷酸化蛋白质组学分析显示,丝氨酸-84磷酸化HSP27(等同于人类丝氨酸-82)水平显著升高。然而,该研究未详细探讨这种磷酸化的功能意义。
在本研究中,作者揭示了HSP27在调控剪切力协调的DDR1可逆相变中的关键作用。作者发现HSP27以流动模式依赖性方式结合DDR1并与之共凝聚,且这种共凝聚对于DDR1解组装至关重要。作者的发现还表明,在扰动流下共凝聚后,HSP27被DDR1磷酸化。出乎意料的是,这种磷酸化削弱了HSP27的伴侣活性,允许DDR1凝聚体的进一步成熟,并导致DDR1从液态向凝胶状态转变。
参考消息:https://www.science.org/doi/10.1126/sciadv.aec2282


