
 五度妙笔
 企业透视镜
 API商城

 数据库
Sci Adv:复旦大学任若冰等团队揭示超长链脂肪酸延长分子机制为结直肠癌靶向治疗开辟新路径
脂肪酸代谢重塑日益被认为是肿瘤进展的关键特征,但极长链脂肪酸(VLCFA)的贡献尚未被完全理解。VLCFAs的延长由内质网(ER)中四种连续酶介导,已被牵涉于肿瘤进展中。然而,VLCFA延长酶背后的分子机制及其对肿瘤发生的具体贡献在很大程度上仍然难以捉摸。
2026年8月12日,复旦大学代谢与整合生物学研究院任若冰团队联合复旦大学附属中山医院钟芸诗团队、代谢院陈立团队、中国科学院上海药物所刘佳团队及苏州大学谢田团队共同通讯在
Science Advances
在线发表题为
“Molecular basis of HACD-TECR complex mediated very-long-chain fatty acid elongation reveal a potential target in colorectal cancer”
的研究论文。该研究证明反式-2-烯酰辅酶A还原酶(TECR)在
结直肠癌
(CRC)中上调。结构和生化分析揭示了TECR介导的反式-2-烯酰辅酶A还原的保守催化机制。
此外,作者显示TECR与3-羟酰辅酶A脱水酶(HACD)形成稳定复合物,协同驱动VLCFA延长。HACD中一个独特的U形环对于识别TECR至关重要。破坏HACD–TECR相互作用界面显著抑制CRC细胞生长。总体而言,这些发现阐明了HACD–TECR介导的VLCFA延长的分子机制,并提示通过调节VLCFA代谢治疗CRC的潜在治疗策略。
极长链脂肪酸(VLCFAs)是碳链为20个或更多的脂肪酸,充当膜脂的结构组分并参与膜动力学、脂质代谢和细胞信号转导。VLCFA延长过程的
功能障碍
已与癌症、心
血管
疾病、肌肉骨骼疾病和神经退行性疾病相关联。VLCFAs的生物合成发生在内质网(ER)中,通过一个四步延长循环进行,由四种膜结合酶介导。极长链脂肪酸延长酶(ELOVL)酶家族(人类中ELOVL1–7)催化第一步和限速步骤,通过缩合酰基辅酶A与丙二酰辅酶A形成3-酮脂酰辅酶A,然后由3-酮脂酰辅酶A还原酶(KAR)还原为3-羟脂酰辅酶A。3-羟脂酰辅酶A脱水酶(HACD)酶家族(人类中HACD1–4)将该中间体转化为反式-2-烯酰辅酶A,随后由反式-2,3-烯酰辅酶A还原酶(TECR)还原以产生延长了两个碳单元的酰基辅酶A。
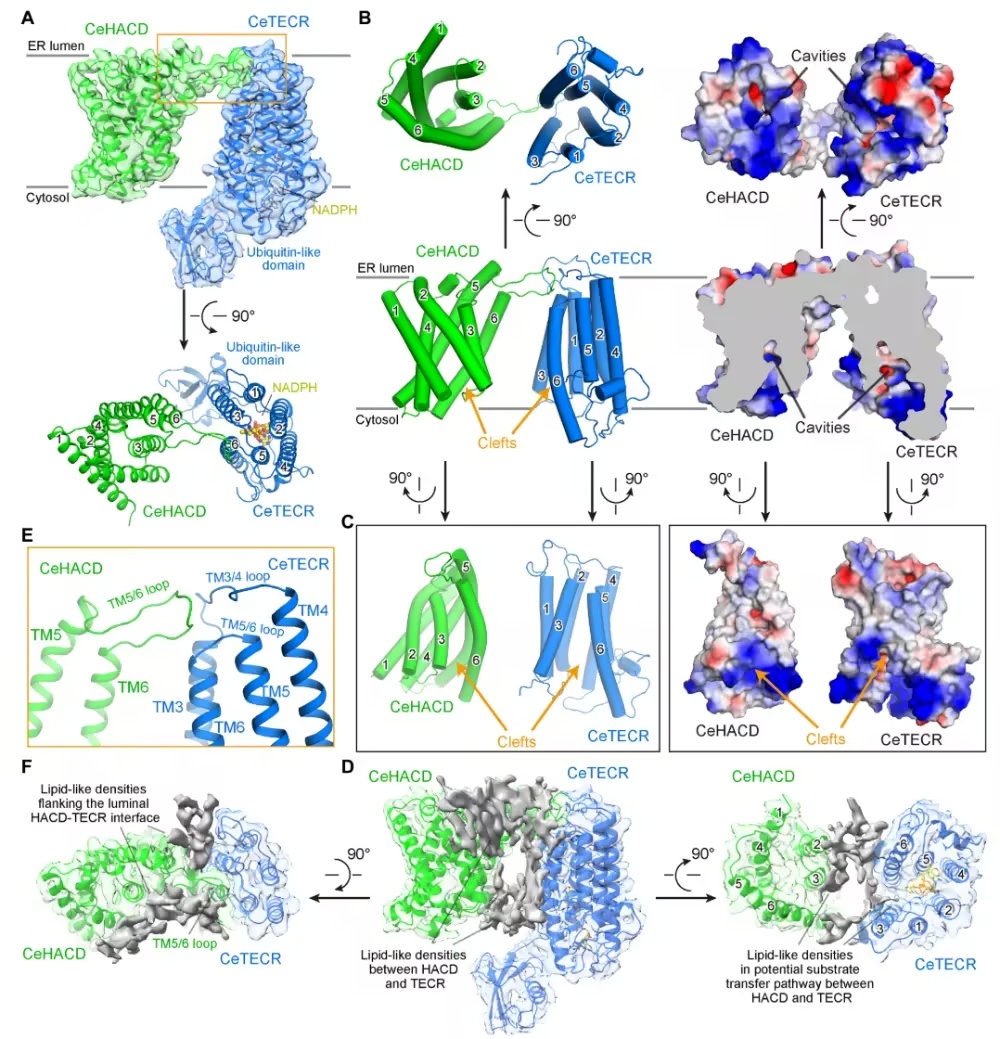
图1. 秀丽隐杆线虫HACD-TECR复合物的结构测定(摘自
Science Advances
)
对于高效的VLCFA生物合成,这些组分以协调方式发挥作用,由蛋白质-蛋白质相互作用和潜在的反馈调节机制促进。值得注意的是,已鉴定了诸如ELOVL-KAR和HACD-TECR等亚复合物,并显示可调节酶活性。这些发现支持人类VLCFA延长复合物组分之间协调作用的模型。然而,VLCFA延长全酶及其亚复合物功能的详细分子机制仍知之甚少。
脂质代谢重编程是肿瘤进展的标志。近期研究表明ELOVL酶牵涉于多种癌症的发展中,包括
前列腺癌
、
乳腺癌
、结直肠癌和
肺癌
。沉默TECR也抑制乳腺
癌细胞
系中的
肿瘤细胞
增殖和集落形成。因此,调节VLCFA合成对于靶向癌症治疗具有治疗潜力,而理解VLCFA延长背后的分子机制可能提供有价值的见解。虽然ELOVL在组织分布和底物特异性上有所不同,但其他酶表现出更广泛的底物偏好。作为催化VLCFA延长循环最后一步的唯一酶,TECR对于完成该生化反应至关重要。鉴于TECR是人类中存在的唯一亚型,靶向TECR以调节VLCFA延长呈现一种合理且潜在有效的治疗策略。
在本研究中,作者通过
生物信息学
分析证明TECR在结直肠癌(CRC)细胞中富集。作者还建立了一个体外酶系统以表征TECR在VLCFA延长中的功能作用。随后作者解析了HACD–TECR复合物的高分辨率三维结构,破译了脱水和还原步骤的催化机制,并揭示了HACD与TECR之间的协同相互作用。此外,作者证明破坏TECR的酶活性或HACD–TECR界面均显著抑制CRC细胞增殖,突显了其作为设计正构或变构调节剂作为治疗药物的潜力,提供了有前景的新治疗途径。
参考消息:


