
 五度妙笔
 企业透视镜
 API商城

 数据库
华中农业大学发表最新Cell论文


编辑丨王多鱼
排版丨水成文
三维(3D)基因组折叠,是一种在进化和发育过程中塑造表型变化的基本但尚未被充分理解的过程。真核生物基因组具有分层的结构,其中染色质区室化将转录活跃区域(A 区室)与非活跃区域(B 区室)分开,而拓扑关联结构域(Topologically Associating Domain,TAD)和染色质环则精细调控增强子与启动子之间的相互作用,从调控基因表达。这种空间层次结构为协调的转录调控提供了结构基础,决定了细胞身份、发育转变以及对环境信号的响应。
在人类中,三维基因组的组织主要由 CCCTC 结合因子(CTCF)和黏连蛋白复合物调控,它们通过序列特异性结合来界定拓扑关联结构域(TAD)边界,并介导染色质环的挤出。然而,这类结构机制在真核生物不同谱系中似乎存在差异。植物缺乏典型的 CTCF 同源蛋白,而是依赖于基于转录因子(TF)以及表观遗传调控的基因组拓扑结构的独特策略。植物特有的转录因子,包括 TCP、HSF 及其他调控家族,有助于建立染色质结构域边界和远距离相互作用,而组蛋白修饰(例如 H3K27me3 和 H3K9ac)则进一步强化功能区室化。这些机制赋予了植物染色质显著的结构可塑性,使其能够在发育和适应过程中动态重组。
尽管植物三维基因组学取得了快速进展,但目前的大部分知识仍来自个别品系或单一发育阶段。因此,我们对三维基因组结构在种群内部如何变化知之甚少,也难以了解这种隐性的结构多样性如何导致表型变异。新兴理论认为,作物驯化不仅涉及基因组序列的选择,还伴随着染色质结构的重大重塑。虽然已观察到野生与栽培种群之间在三维基因组组织上的差异,但在群体尺度上,染色质拓扑结构如何与顺式调控元件(CRE)共同进化,尚缺乏全面理解。同样,自然选择或人工选择在驯化过程中塑造三维染色质特征的程度,也大多尚未被探索。理解染色质折叠在群体水平上的多样性,对于揭示非编码变异如何影响基因组高级结构及表型演化至关重要。
异源四倍体陆地棉(Gossypium hirsutum L.)为解答这些问题提供了强有力的模型。大约 160 万年前,两个二倍体祖先基因组发生融合,随后在大约 4000 年前被人类驯化,对 At 和 Dt 亚基因组的非对称选择导致了同源基因对之间广泛的调控差异。这一过程将野生近缘种短而粗糙的纤维转变为现代栽培品种中长且可纺的纤维。棉花纤维是一种单一、细长的表皮细胞,为研究染色质结构与转录调控之间的关系提供了理想的系统,避免了多细胞组织的异质性干扰。
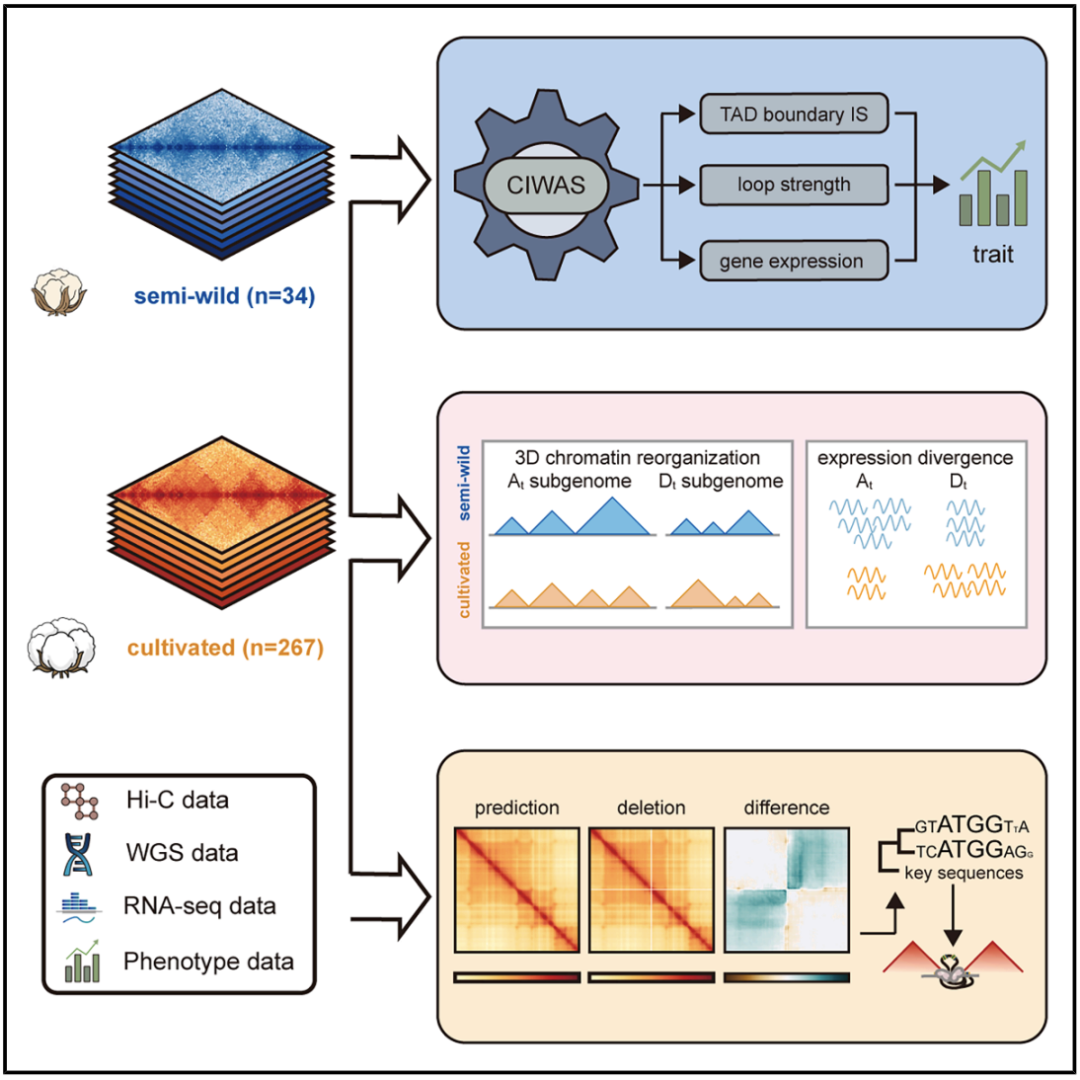
在这项最新研究中,研究团队通过对 34 个半野生和 267 个栽培异源四倍体陆地棉进行群体规模的 Hi-C 测序分析,构建了一个全景三维基因组图谱,全面揭示了拓扑关联结构域(TAD)和染色质环在结构上的广泛多样性。
研究团队进一步通过染色质互作组全基因组关联分析(Chromatin interactome-wide association study,CIWAS)鉴定了 105 个 TAD 重构事件和 58 个染色质环重连事件,这些结构变化构成了棉花纤维品质的三维染色质基础,使纤维强度的遗传力估计值提高了 16%,纤维长度提高了 20%。
研究团队发现,在序列定义的选择扫荡区域中,驯化选择固定了 57% 的三维构象特征,从而将序列层面与染色质层面的选择解耦,并改变了栽培棉中 39 个同源基因对的亚基因组表达平衡。基于序列的建模与突变分析表明,C2H2 型锌指蛋白 YY1 是调控三维基因组组织的一种保守中介因子。
https://www.cell.com/cell/fulltext/S0092-8674(26)01011-1




点在看,传递你的品味


