 五度妙笔
 企业透视镜
 API商城

 数据库
Cell子刊:一场"先激活、再拆解"的免疫博弈,温州大学孙文超等揭示N蛋白逃逸宿主防御
STING 通路是机体抵御 RNA 病毒感染的核心通路,但该通路在猪急性腹泻综合征冠状病毒(SADS-CoV)感染过程中的作用尚不明确。
2026年8月27日,温州大学孙文超、浙江大学周继勇、中国农业科学院长春兽医研究所Lu Huijun共同通讯在
Cell Reports(IF=7.7)
在线发表题为
SADS-CoV nucleocapsid protein antagonizes DAD1-mediated STING activation to prevent cytosolic DNA sensing
的研究论文。
本研究揭示一套双重调控机制:SADS-CoV可通过核膜破裂诱导STING活化,随后又利用自身核衣壳(N)蛋白实现免疫逃逸。
病毒感染引发染色质渗漏,进而激活cGAS-STING通路,启动干扰素应答。定位于内质网的细胞死亡防御蛋白1(DAD1)可促进STING磷酸化,并介导STING转运至高尔基体,在该过程中发挥关键作用。
SADS-CoVN蛋白可结合STING,阻断其活化与转运过程,进而破坏DAD1介导的抗病毒信号通路。N蛋白E368A位点突变会减弱其与STING的结合能力,削弱病毒的免疫抑制效应。
上述研究结果证实,SADS-CoVN蛋白通过阻断DAD1介导的STING活化过程逃逸宿主天然免疫,为抗病毒策略研发提供潜在靶点。
猪急性腹泻综合征冠状病毒(SADS‑CoV)是一种致病性α冠状病毒,可造成新生仔猪严重腹泻、呕吐以及高死亡率,对全球养猪业构成重大威胁。但介导SADS‑CoV致病的分子机制尚不明确。在宿主抗病毒天然免疫中,cGAS‑STING通路除了识别胞质DNA,在多种RNA病毒感染过程中同样发挥关键作用。
环二核苷酸cGAMP配体依赖性激活STING后,启动下游信号,介导广泛的抗病毒应答。近期研究发现,SARS‑CoV‑2可通过染色质外排间接激活cGAS‑STING信号。此外,STING还可交叉调控RIG‑I‑MAVS等RNA识别通路,进一步证实其在抗病毒防御中的核心地位。
STING信号通路的激活严格依赖STING从内质网(ER)转运至高尔基体,该过程受COPII囊泡与多种内质网驻留蛋白精密调控。本研究探究了一种尚未被充分研究的内质网驻留免疫蛋白——细胞死亡防御蛋白1(DAD1)。
DAD1是寡糖转移酶复合物(OST)的核心亚基,通过调控蛋白质N‑糖基化维持内质网稳态,并参与细胞凋亡调控。越来越多证据表明,OST复合物介导的N‑糖基化修饰,对模式识别受体(PRRs)的生成与功能成熟至关重要,保障PRRs精准识别病原相关分子模式(PAMPs)。
既往在青石斑鱼中的研究报道,脂多糖(LPS)注射后,脾脏与肝脏组织DAD1表达水平显著上调,提示DAD1参与免疫激活。肿瘤相关研究显示DAD1具备免疫调控功能,能够促进树突状细胞抗原呈递以及T细胞活化。即便如此,DAD1参与天然免疫的具体分子机制仍有待进一步解析。
冠状病毒为完成有效感染,会编码多种蛋白拮抗宿主天然免疫应答。其中核衣壳(N)蛋白是最为保守的结构蛋白,既参与病毒基因组组装包装,还可干扰RIG‑I‑MAVS信号轴,抑制IFN‑I产生。但SADS‑CoV的N蛋白是否靶向cGAS‑STING通路仍未见报道。
鉴于cGAS‑STING信号通路在抗病毒免疫中的重要作用日益受到重视,解析SADS‑CoV对该通路的调控模式,具备重要科学价值与转化应用前景。
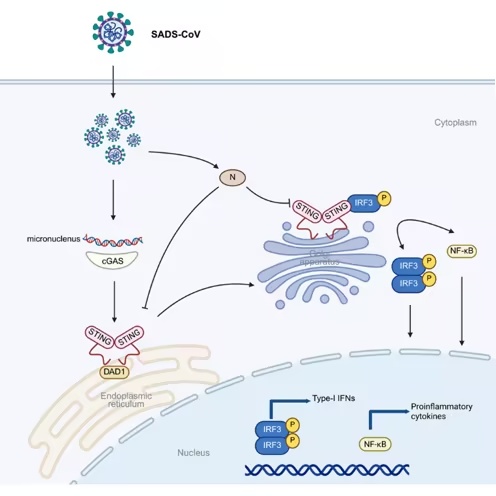
图形摘要(摘自
Cell Reports
)
本研究证实,SADS‑CoV通过染色质渗漏激活非经典cGAS‑STING天然免疫通路。该激活过程触发双重磷酸化级联反应,分别介导IRF3依赖的IFN‑I生成与p65介导的NF‑κB信号通路激活,二者均可在体外有效抑制病毒复制。
内质网驻留蛋白DAD1通过促进STING磷酸化与转运,增强抗病毒应答。为逃逸宿主防御,SADS‑CoV采取拮抗策略:其N蛋白直接结合STING,阻断STING磷酸化与高尔基体转运,同时破坏DAD1介导的STING转运过程。
本研究进一步证实N蛋白氨基酸残基E368是发挥功能的关键位点;E368A突变可降低N蛋白与STING的结合亲和力,削弱其对干扰素应答的抑制作用,同时减弱病毒复制能力。本研究揭示一套病毒免疫逃逸机制:N蛋白竞争性结合STING的跨膜结构域(TM),破坏DAD1依赖的抗病毒信号,为靶向抗病毒药物研发提供理论依据。
参考消息:10.1016/j.celrep.2026.117917


