
 五度妙笔
 企业透视镜
 API商城

 数据库
Mol Cell:北京大学王嘉东等发现IRAK1-snRNA,给转录活跃区的DNA损伤修复搭建“桥梁”
转录活性区域中的基因组完整性对于抑制致癌突变至关重要,但在这些区域内调控精确同源重组(HR)修复的机制仍然难以捉摸。
2026年8月31日,北京大学王嘉东和贵州省人民医院刘万常共同通讯在
Molecular Cell
在线发表题为
An IRAK1-snRNA axis activates ATM to promote accurate repair within transcriptionally active chromatin
的研究论文。
该研究报道IRAK1-剪接体轴以small nuclear RNA(snRNA)为核心枢纽,在人类癌细胞中强效促进转录活性染色质内DNA双链断裂(DSB)位点的准确修复。
机制上,IRAK1磷酸化剪接体丝氨酸/精氨酸(SR)富集蛋白以将snRNA招募至DSB位点,诱导MRE11-RAD50-NBS1(MRN)复合物在转录活性区域附近形成稳健凝聚体,以创建ATM激活平台。
总之,作者的发现定义了一种在转录活性结构域中调控区域特异性精确修复的普遍机制,其中snRNA充当“转录修复桥”将转录过程与HR修复相连接,并最终维护基因组稳定性。抑制IRAK1轴会损害转录活性区域中的HR修复,导致这些区域特异性突变率显著增加以及癌细胞化疗敏感性增加。
转录活性区域对细胞稳态至关重要,由于其开放的染色质状态,易于发生致突变的DSBs。在哺乳动物中,RNA聚合酶II和复制叉的碰撞直接导致DSBs。此外,转录活性开放染色质缺乏核小体保护,促进R-loops的形成,后者暴露单链DNA(ssDNA)使其易受核酸酶或活性氧(ROS)的损伤,从而增加断裂频率。这种“高损伤负荷-高保真需求”的特征要求在这些转录活性区域中存在高效且精确的DSB修复机制。
在转录活性区域中,DSB被调控以偏向高保真HR修复,其中R-loop驱动的HR作为核心通路。AsiSI诱导的DSBs的全基因组谱分析揭示,核心HR因子主要富集于这些区域中的损伤位点。
机制上,Rad52识别DNA-RNA杂交体,并与着色性干皮病G组互补蛋白(XPG)协作以产生用于HR的ssDNA。同时,转录的mRNA与RAD51AP1形成置换环(DR-loops)以促进链入侵,与非活性区域中易出错的非同源末端连接(NHEJ)相比,修复效率提高70%。
动态染色质结构重塑也是精确DSB修复的关键。在哺乳动物细胞中,DSBs激活ATM以将受损的拓扑关联结构域(TADs)凝聚成一个新的损伤相关染色质区室。关键地,富集于R-loops的DNA损伤应答基因也被招募至此区室,增强DSB聚类和修复效率。
大多数聚类的DSBs定位于开放染色质,并主要通过HR修复。这种空间组织与其他区域中修复因子的分散招募截然不同,突显了ATM在空间上协调DSB修复中的作用。
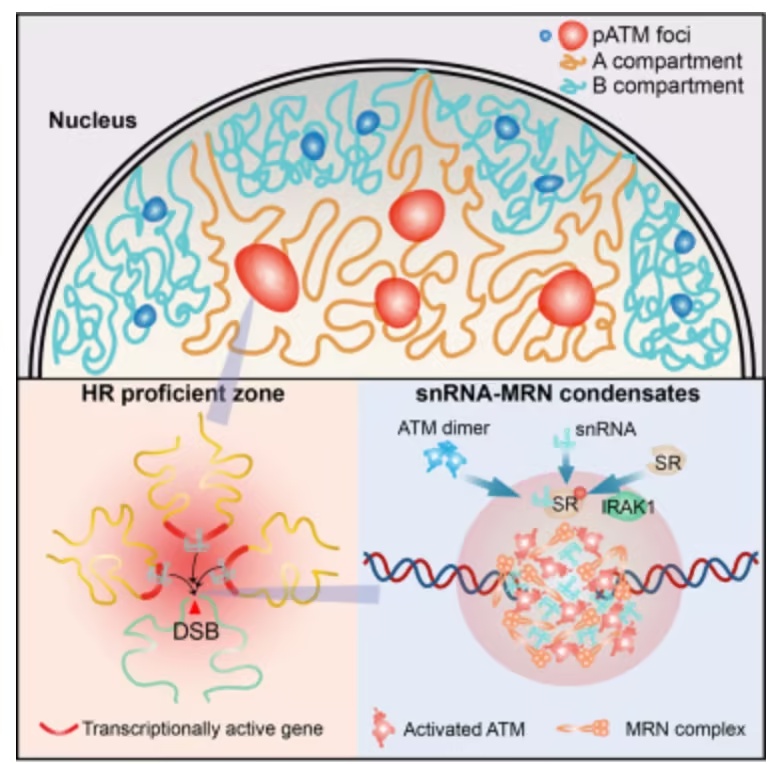
图1.全文总结图(摘自
Molecular Cell
)
ATM是HR和NHEJ两者的核心激酶,在S/G2期优先被激活以支持精确的HR修复。在DSB诱导后,MRN复合物迅速将ATM招募至DNA末端,通过解离为活性单体并在Ser1981处磷酸化来启动其激活。
活化的ATM通过磷酸化多种底物触发信号级联:它首先磷酸化H2AX以产生γH2AX,后者招募MDC1并放大ATM-MRN复合物招募;ATM磷酸化BRCA1和NBS1等修复因子,将HR相关蛋白引导至DSB位点;此外,ATM通过激活CHK2抑制CDK1,诱导细胞周期停滞以确保有足够的修复时间。
经典ATM激活依赖于MRN复合物与DSB末端的结合,MRN复合物和DSB末端两者都是必需的。MRN介导的ATM激活高度高效,照射后10分钟内超过50%的细胞ATM被激活。然而,MRN复合物如何在DSB位点有限的区域内实现稳健富集,并形成一个能够高效激活ATM的大型平台,仍不清楚。
作者的研究表明,IRAK1促进MRN复合物招募以在转录活性染色质内的DSBs处激活ATM,实现精确的HR修复。IRAK1/IRAK4通过NF-κB和丝裂原活化蛋白激酶(MAPK)通路驱动促炎应答,并常在癌症中异常激活,从而促进肿瘤细胞增殖和转移。
IRAKs也参与DNA损伤应答,其中IRAK4磷酸化IRAK1并促进其向细胞核的招募,最终促进凋亡。在此,作者发现IRAK1磷酸化丝氨酸/精氨酸(SR)蛋白以在DSBs附近招募snRNAs,促进大型MRN凝聚体的形成。这些凝聚体招募额外的活性染色质,建立了一个高效ATM激活的平台。
参考消息:https://www.cell.com/molecular-cell/S1097-2765(26)00553-8


