
 五度妙笔
 企业透视镜
 API商城

 数据库
Cell Death & Differ:郑州大学张晓菊等发现ALDH3A2作为新型NRF2激活剂,开辟KEAP1突变肿瘤铁死亡依赖的可成药轴
转录因子核因子红细胞2相关因子2(NRF2)是细胞抗氧化应答的主调控因子,该应答防御铁死亡并促进肿瘤发展。
2026年8月17日,郑州大学张晓菊和山东大学初波共同通讯在
Cell Death & Differentiation
在线发表题为
A targetable ALDH3A2-NRF2 axis mediates KEAP1-mutant tumour development via ferroptosis inhibition
的研究论文。
该研究通过进行醛脱氢酶(ALDH)家族shRNA筛选,作者将醛脱氢酶3家族成员A2(ALDH3A2)鉴定为一种强效的NRF2激活因子,该因子抑制铁死亡。
有趣的是,ALDH3A2在野生型(WT)Kelch样ECH相关蛋白1(KEAP1)和突变型KEAP1肿瘤细胞中均有效激活NRF2。机制上,ALDH3A2抑制糖原合成酶激酶3β(GSK3β)的磷酸化,并阻断E3泛素连接酶β-转导素重复含蛋白(BTRC)向NRF2的招募,从而通过阻止其蛋白酶体降解来稳定NRF2。
ALDH3A2的敲低显著促进GSK3β信号通路的激活并加速NRF2降解。ALDH3A2独立于其酶活性稳定NRF2,因为ALDH3A2的酶失活不能在体外和体内阻断ALDH3A2介导的NRF2激活和铁死亡抑制。
总之,作者的研究揭示了一条新的NRF2调控通路,并提示ALDH3A2作为KEAP1突变肿瘤的有前景的可成药靶点。
铁死亡——由积累的过氧化磷脂以铁依赖性方式诱导——影响肿瘤进展,调节治疗逃避,并介导肿瘤微环境的动态重塑。铁死亡的发生受铁代谢、脂质代谢以及包括谷胱甘肽过氧化物酶4(GPX4)-谷胱甘肽(GSH)、铁死亡抑制蛋白1(FSP1)-CoQH₂、GTP环化水解酶1(GCH1)-BH₄和二氢乳清酸脱氢酶(DHODH)-CoQH₂在内的多种防御系统的严格调控。这些防御系统通过将脂质氢过氧化物转化为无毒的脂质醇来抑制铁死亡细胞死亡。
醛脱氢酶(ALDH)基因超家族包含一组降解醛类的酶,醛类是氧化脂质的部分副产物。醛脱氢酶1家族成员B1(ALDH1B1)的酶活性通过介导4-羟基-2-壬烯醛(4-HNE)代谢并抑制有毒脂质过氧化物的积累,使细胞对铁死亡脱敏。
此外,新出现的证据表明醛脱氢酶7家族成员A1(ALDH7A1)和1家族成员A3(ALDH1A3)通过还原型烟酰胺腺嘌呤二核苷酸(NADH)依赖的FSP1机制促成铁死亡抵抗。然而,ALDH家族是否通过非酶通路参与铁死亡调控在很大程度上仍未被探索。
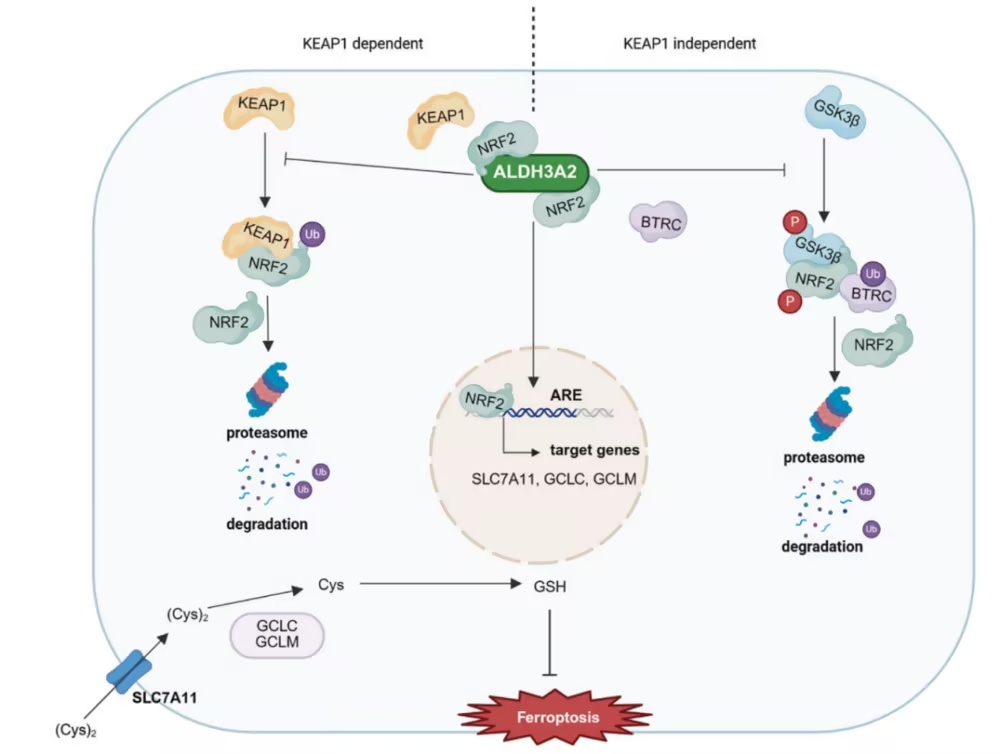
图1. ALDH3A2介导的NRF2调控铁死亡的工作模型(摘自
Cell Death & Differentiation
)
GPX4-GSH系统在多种肿瘤细胞系中对抗铁死亡占据主导地位。核因子红细胞2相关因子2(NRF2)调控许多参与GPX4-GSH介导的铁死亡防御的基因转录。通过驱动溶质载体家族7成员11(SLC7A11,也称xCT)以及GSH生物合成酶谷氨酸-半胱氨酸连接酶催化亚基(GCLC)和谷氨酸-半胱氨酸连接酶修饰亚基(GCLM)的表达,NRF2维持GPX4消除脂质过氧化物所需的高硫醇池。
许多研究已描述癌细胞中NRF2激活促进肿瘤进展和转移,并赋予对放化疗的耐药。Kelch样ECH相关蛋白1(KEAP1)——NRF2的负调控因子——在正常组织细胞中严格控制NRF2的活性。
然而,KEAP1在多种癌细胞中频繁突变,特别是在肺癌中(约20%)。KEAP1突变肺癌细胞中不受控制的、组成性NRF2激活加速肿瘤发展和转移,目前尚无针对该情况的靶向治疗。因此,研究NRF2的新调控通路将为KEAP1突变癌症提供新的治疗策略。
在此,作者的研究揭示醛脱氢酶3家族成员A2(ALDH3A2)是一种强效铁死亡抑制因子。ALDH3A2的缺失使肿瘤细胞对铁死亡敏感化,而ALDH3A2的异位表达使细胞对铁死亡具有抗性。机制上,ALDH3A2介导的铁死亡抑制依赖于NRF2的激活。
ALDH3A2抑制GSK3β的磷酸化,并阻断E3泛素连接酶β-转导素重复含蛋白(BTRC)向NRF2的招募,从而在野生型(WT)或KEAP1突变肺癌细胞中抑制NRF2的蛋白酶体降解。
此外,作者的研究阐明ALDH3A2以酶非依赖方式在体外和体内有效稳定NRF2并促进肿瘤生长。总之,作者的发现为NRF2调控机制提供了新见解,并为KEAP1突变癌症治疗提供了新型治疗选择的启示。
参考消息:https://www.nature.com/articles/s41418-026-01850-2


