
 五度妙笔
 企业透视镜
 API商城

 数据库
Cell Stem Cell:余发星及合作团队揭示器官尺寸调控与器官衰老再生新机制
正确的尺寸对器官功能至关重要。然而,器官及整个机体如何知道什么时候停止生长?又如何在损伤之后,重新启动生长程序?这两个与器官尺寸相关的问题,均入选《科学》杂志评选的
125
个重大科学问题
。宾夕法尼亚大学
Ben Stanger
教授也在其著作
From One Cell
中指出,器官尺寸调控机制可能是自然界隐藏得最深的秘密之一。
过去二十余年的研究将线索指向
Hippo
信号转导通路。当
Hippo
通路开启时,下游转录共激活因子
YAP/TAZ
(以下统称
YAP
)受到抑制,器官生长被“踩下刹车”;而当
Hippo
通路关闭、
YAP
被激活时,细胞增殖与组织生长随之启动。因此,
Hippo
通路一度被视为决定器官尺寸的“开关”。但是
Hippo
通路如何调节细胞增殖并决定器官尺寸,始终是该领域悬而未决的基本问题
。
近期,
Hippo
通路调节器官尺寸这一观点受到了挑战。以肝脏为例,强行激活
YAP
虽然能让肝脏迅速增大,却伴随着肝细胞去分化、向胆管细胞转分化,以及正常肝小叶结构的破坏。那么
YAP
究竟是在促进正常的器官生长,还是导致异常增生?
另外,如果
YAP
真的负责驱动肝脏的正常生长,为什么在肝脏中特异性敲除
Yap
后,肝脏大小依然基本正常?
这些令人困惑的现象提示,我们对
Hippo
通路生理功能的理解仍不完整,其调控正常器官生长的真正机制仍有待进一步揭示。
2026
年
9
月
4
日,复旦大学生物医学研究院
/
附属儿科医院余发星团队及其合作者在
Cell Stem Cell
在线发表题为
IGF2 acts downstream of Hippo signaling to regulate organ growth and restore liver regeneration in aging
的研究论文。
研究揭示,
Hippo
信号通路通过调节胰岛素样生长因子
2
(
IGF2
)来精确调控器官尺寸,该发现重新建立了
YAP
活性与生理性器官生长之间的联系。更重要的是,这套
Hippo–IGF2
生长调控程序贯穿发育、损伤修复和衰老等多个过程,为开发更可控、安全的器官再生策略提供了全新理论框架与思路。
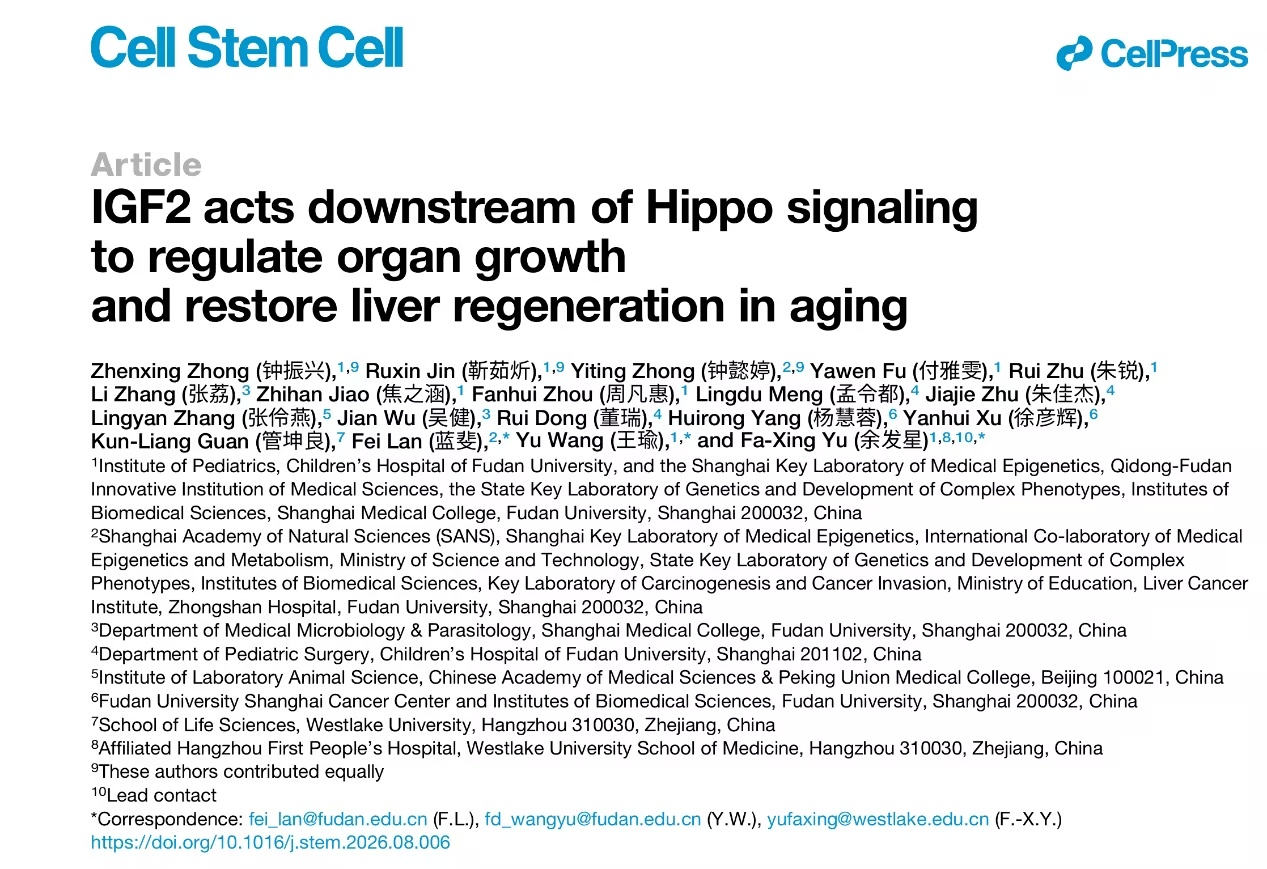
器官长到合适大小,主动熄灭“生长引擎”
幼年肝脏由快速生长逐渐转入相对静息状态,这一过程中究竟发生了什么变化?该研究发现,
Igf2
的动态表达与
Hippo
通路活性及肝脏生长速率高度协同,且
Igf2
的转录受
YAP
直接调控。
胚胎发育阶段,
Igf2
持续高表达,是重要的促生长因子。出生后,肝细胞
YAP
活性逐步下降,
Igf2
表达也随之完全沉默。相反,在成年小鼠肝脏中活化
YAP
后,原本沉默的
Igf2
可被强烈诱导,并导致肝脏快速生长。
为进一步验证
YAP–IGF2
程序在器官尺寸调控中的作用,研究团队在肝脏中过表达
Igf2
,发现肝脏尺寸显著增加,和
YAP
激活表型部分相似。相反,在
YAP
持续活化小鼠肝脏中敲除
Igf2
基因,肝脏过度生长表型被显著抑制。
因
此,
IGF2
是
Hippo
通路调控肝脏尺寸的充分且必要条件。有趣的是,由于胚胎期和新生期
IGF2
本身处于高表达状态,无论是
YAP
还是
IGF2
的获得性表型仅在断奶期后(约
3
周龄)才突然显现,这表明
YAP-IGF2
程序在出生后的关闭是器官生长停滞的重要原因。
这些发现凸显了
IGF2
在器官尺寸调节过程中的关键作用。那么,器官如何知道什么时候停止生长?该研究以小鼠肝脏为例,发现出生后逐步建立的
Hippo
信号,主动关闭
YAP–IGF2
生长引擎,可能是决定器官尺寸的重要机制。
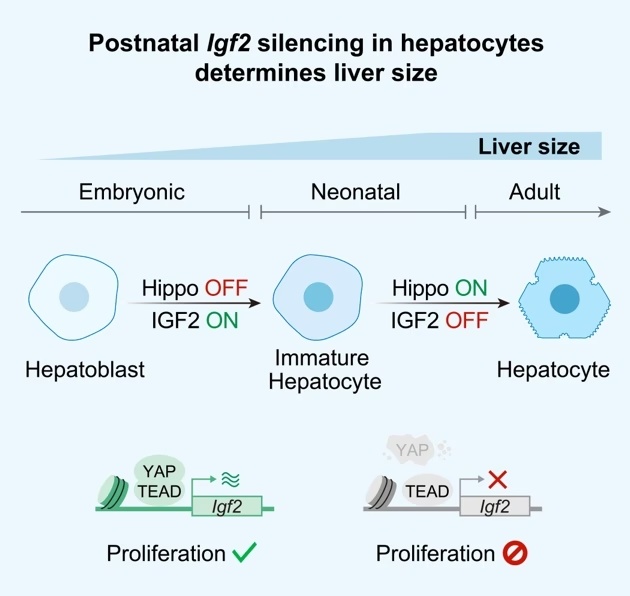
同样的信号和因子,不一样的转录和细胞命运
YAP
直接调控
IGF2
,这样一个看似简单、直接的机制,为何隐藏了这么多年?一个重要的原因是,该调控机制在绝大多数体外培养细胞系中并不存在,在体内也受到多种因素限制。
不同于其它
Hippo
通路靶基因,
IGF2
表达具有显著的发育时期、细胞类型及
Hippo
信号剂量依赖性:
1
)
YAP
对
Igf2
转录的调节主要发生在出生后的快速发育时期;
2
)
YAP
仅在主导肝脏尺寸的肝细胞中调节
Igf2
转录,在胆管细胞及间质细胞中
Igf2
完全沉默;
3
)并非
YAP
活性越强,
Igf2
表达越高,完全激活
YAP
导致肝细胞转分化成胆管细胞,
Igf2
表达反而被抑制。
因此,适度的
YAP
活性能够激活
Igf2
并启动生理性生长,而进一步增强
YAP
后,细胞反而逐渐退出这一生长程序,转向细胞身份和命运的重塑。
为什么面对同样的
Hippo
信号和转录因子
YAP
,
Igf2
在不同细胞状态下的响应截然不同?该研究发现,在肝细胞中,
Igf2
启动子一直保持相对开放。一旦
YAP
进入细胞核,就可以通过
TEAD
顺利结合
Igf2
启动子,“推门而入”迅速启动
Igf2
表达。
但是,在胆管等细胞中,
Igf2
启动子区域出现大量抑制性组蛋白修饰
H3K27me3
,相当于给这扇“门”上了锁。因此,决定一个细胞是否响应,并不仅仅是
YAP
有没有被激活,还要看这个细胞的染色质是否允许
YAP
抵达并激活这一基因。
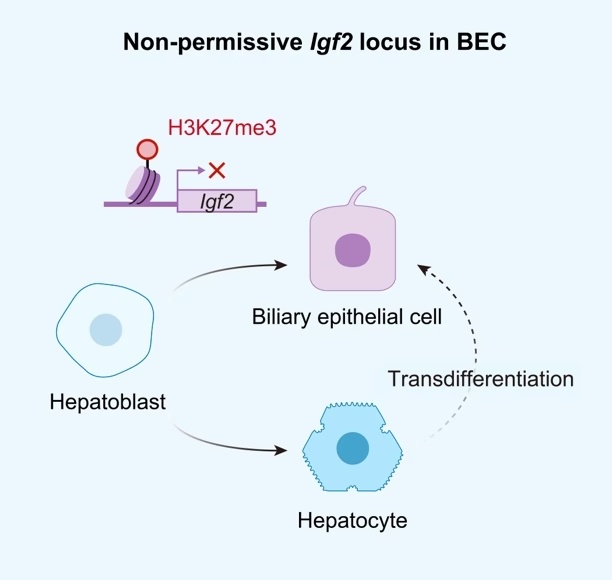
从局部到整体,
IGF2
指导全身器官协调生长
研究人员还发现了一个意想不到的现象:如果只在肝脏中敲除
Igf2
,肝脏却没有变小。这和肝脏特异性敲除
Yap
不影响肝脏尺寸的表型高度一致。(
3
)关键在于,
IGF2
并非只能在产生它的组织中发挥作用,它是一种可以进入血液循环的分泌型生长因子。
因此,如果肝脏自己不产生
IGF2
,身体其他地方产生的
IGF2
,会不会通过循环系统跨器官“补位”?结果显示,肝脏特异性敲除
Igf2
或
Yap
,并不会明显降低血液中的
IGF2
水平,而来自其他组织的循环
IGF2
仍然能够支持肝脏生长。
然而,当研究人员进一步在全身范围敲除
Igf2
或
Yap
后,循环
IGF2
水平明显下降,小鼠整体生长速度减慢,肝脏、心脏、肾脏和肠道等多个器官均明显变小。相反,仅在肝脏持续产生
IGF2
,就足以升高循环
IGF2
水平,并促进包括肝脏、心脏和肾脏在内的多个器官生长。
这些结果提示,
IGF2
可能构成了一张协调不同器官的“全身生长调控网络”。某一个器官局部缺少
IGF2
时,其他组织可以通过循环系统进行补偿;只有当整个身体的
YAP–IGF2
程序都被关闭时,真正的“小器官、小身体”表型才会显现出来。
因此,器官尺寸调控并不完全是一场“各自为战”的生长竞赛。机体或许通过系统性机制协调不同器官的生长,让它们彼此匹配、同步生长。这个理论不仅解释了“为什么肝脏特异性敲除
Igf2
或
Yap
后没有变小”这一长期令人困惑的现象,也为“整个机体如何知道什么时候停止生长?”这个问题提供了一个答案。
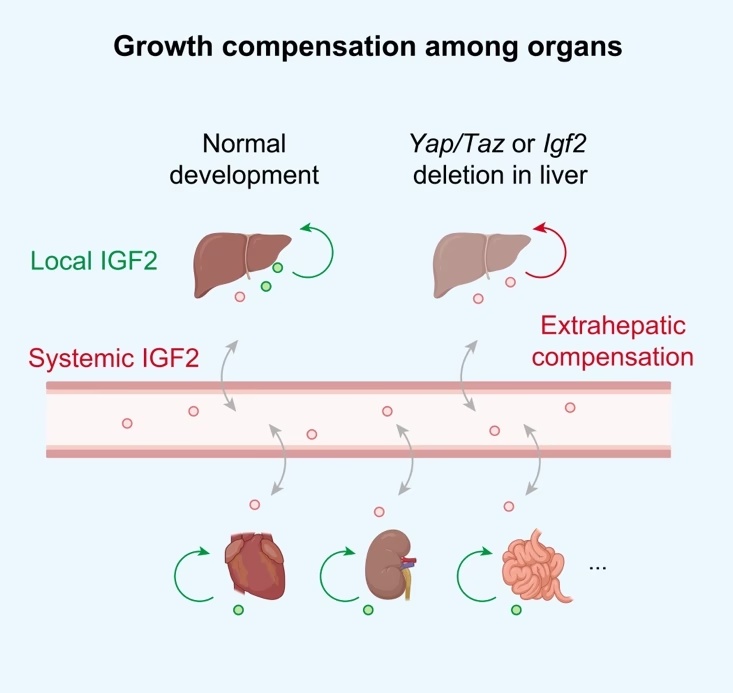
年轻时用于生长的机制,能否逆转老年再生缺陷?
肝脏是哺乳动物中少有的能够再生的器官。该研究发现,在成年小鼠肝脏再生过程中,
Hippo
通路的抑制及
YAP-IGF2
的重新激活至关重要;而阻断
YAP-IGF2
的激活显著抑制肝脏再生。因此,
IGF2
的表达对于肝脏损伤后的修复和再生过程是必要的。
但是,随着年龄增长,肝脏再生能力明显下降。面对相同的慢性肝损伤,老年肝脏中
YAP
和
IGF2
都没能被明显激活。因此,
YAP-IGF2
这个促生长机制年轻时活跃,成年时潜伏,老年时失灵。
衰老相关的再生障碍至少部分源于
Hippo–IGF2
调控程序失去了对损伤的响应能力。既然失灵的是上游的“开关”,那么能否直接补回
IGF2
这一生长信号促进老年肝脏再生?
研究发现,无论在损伤前还是损伤后向老年小鼠肝细胞中过表达
Igf2
,都能够显著促进肝细胞增殖,加快肝脏质量恢复,并改善组织学和血清生化指标。目前,能够逆转老年肝脏再生的方法非常有限,因此
IGF2
是一个颇具潜力的再生医学干预靶点。
同属一个生长调控程序,决定不同的生长模式
YAP-IGF2
程序在器官生长和再生过程中发挥重要作用,并且很可能是一个跨器官和跨物种的保守生长调控机制。但是
YAP
为什么要在进化出特殊的调节
IGF2
转录的机制?
YAP
和
IGF2
的功能层面是否有差异?不管是在发育还是再生过程中,直接激活
YAP
或表达
IGF2
都能促进肝脏生长。
但是,如同前期报导,
YAP
激活导致的是一种异常生长模式:引发大范围肝细胞去分化或转分化,使肝细胞重新获得祖细胞样状态,并扰乱原本精细的肝小叶代谢分区。相反,
IGF2
倾向于驱动一种接近生理状态的生长模式,在肝脏变大过程中,肝细胞分区、功能得到很好的维持,不同细胞群落的比例和肝脏形状都没有发生显著变化。
这些表型揭示了
YAP
和
IGF2
在分子层面的重要区别:
YAP
同时打开了“生长”和“细胞可塑性”等多套程序,而
IGF2
更像是其中专门负责生理性生长的输出支路。因此,在器官尺寸调控或器官再生过程中,与其直接把
YAP
这只“总开关”推到底,不如选择性恢复它下游真正负责生理性生长的
IGF2
。
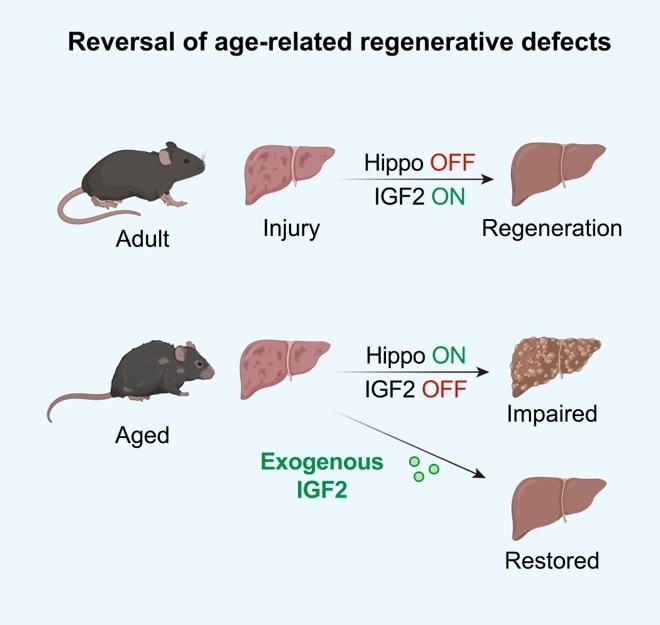
该研究首次鉴定到
Igf2
是
Hippo
通路的关键生理效应因子,同时明确了
IGF2
这一经典印记生长因子的上游调控信号。该研究揭示了
Hippo–IGF2
信号如何精确调控器官尺寸,并为肝脏损伤修复与再生,特别是如何逆转衰老再生缺陷提供了新思路。
与此同时,研究还揭示
IGF2
能够通过循环系统在不同器官之间发挥作用,使器官尺寸控制从单个细胞、单个器官的局部问题,拓展为一个全身尺度的协调过程。
复旦大学生物医学研究院钟振兴、靳茹炘、钟懿婷为该论文共同第一作者。复旦大学生物医学研究院
/
附属儿科医院余发星研究员、复旦大学生物医学研究院青年研究员王瑜和研究员蓝斐为该论文共同通讯作者。复旦大学吴健教授、董瑞教授、研究员徐彦辉和西湖大学管坤良教授等同行为本研究做出了重要贡献。
原文链接:https://www.cell.com/cell-stem-cell/abstract/S1934-5909(26)00307-3


