五度妙笔
 企业透视镜
 API商城

 数据库
实体瘤CAR-T屡战屡败,原来是被脂肪“暗算”了?最新研究:抑制BAZ2A联合治疗可逆转耗竭
编者按
CAR-T细胞疗法在血液肿瘤中已经改写了治疗史,但一到实体瘤就频频“熄火”。过去,我们习惯把原因归到T细胞自身:抗原丢失、耗竭、抑制性受体高表达。但2026年10月底发表于《自然·癌症》(Nature Cancer)的一项中国研究给出了另一个答案:问题可能从肿瘤细胞内部就开始了,它先改了自己的“生产车间”,再悄悄把免疫战场变成了一锅油。
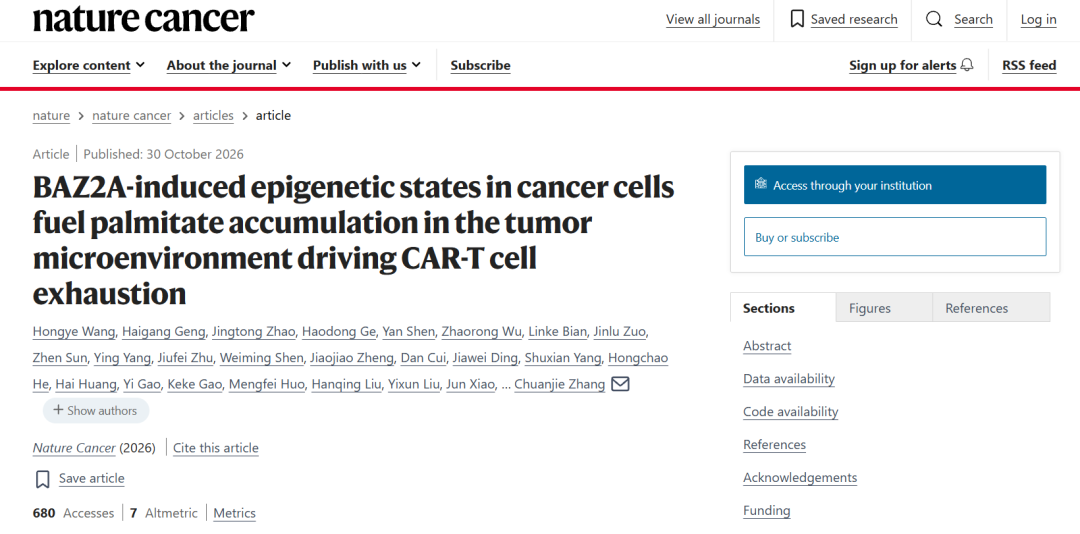
这项由上海交通大学医学院附属瑞金医院张传杰教授、郑民华教授,同济大学附属东方医院翟波教授,上海交通大学医学院附属仁济医院/上海市肿瘤研究所金浩杰教授,以及中国科学技术大学附属第一医院刘连新教授共同参与的研究,首次揭示了一条完整的“表观遗传—代谢—免疫”抑制轴:肿瘤细胞通过染色质重塑因子BAZ2A促进棕榈酸合成与外排,过量棕榈酸被CAR-T细胞摄取后,破坏其线粒体功能,推动细胞走向耗竭。
从CRISPR筛选到“油壶”锁定
研究团队首先在肾细胞癌小鼠模型中开展体内CRISPR筛选,对524个表观遗传调控因子进行系统分析,并通过体外二次筛选锁定BAZ2A。敲除肿瘤细胞的BAZ2A后,CAR-T细胞的增殖、细胞因子分泌和肿瘤杀伤能力均明显增强,肿瘤组织中CD8⁺ T细胞浸润增加,调节性T细胞减少。在肾细胞癌及结直肠癌小鼠模型中,BAZ2A缺失同样增强了CAR-T疗效,延缓肿瘤生长并延长生存期。
机制层面,BAZ2A与转录因子PAX8协同作用,激活脂肪酸合酶FASN基因相关的超级增强子。FASN是脂肪酸合成的关键酶,其表达升高导致肿瘤细胞内棕榈酸合成增加,并向微环境释放。
棕榈酸如何“饿垮”CAR-T
微环境中积累的棕榈酸被CAR-T细胞摄取后,触发了一条精确的分子破坏链。棕榈酸促进棕榈酰转移酶zDHHC6与转录共激活因子PGC-1α相互作用,使PGC-1α在Cys624位点发生棕榈酰化修饰。这一修饰并不改变PGC-1α的蛋白总量,却阻碍其进入细胞核。PGC-1α是线粒体生物发生的核心调控因子,入核受阻后,NRF1、TFAM等相关基因表达下降,线粒体新生程序停摆。
与此同时,棕榈酸还改变CAR-T细胞的染色质状态,增加耗竭相关基因区域的可及性,推动细胞走向耗竭。两条路径叠加,CAR-T细胞“不是死了,而是没电了”——还留在肿瘤里,却分泌不出干扰素、杀不动癌细胞。
反向验证进一步确认了棕榈酸的核心地位:向BAZ2A缺失肿瘤细胞的上清中重新补充棕榈酸,其对CAR-T的抑制作用再次出现;富含棕榈酸的饮食同样削弱了小鼠体内CAR-T的治疗效果。
GSK2801:先“清洁战场”,再让CAR-T进场
研究的转化落点在于BAZ2A抑制剂GSK2801。在患者来源的肾细胞癌类器官和移植瘤模型中,GSK2801增强了CAR-T的肿瘤杀伤效果;在肾细胞癌和结直肠癌原位肿瘤小鼠模型中,GSK2801联合CAR-T增加了CAR-T细胞浸润和持续存在,增强抗肿瘤活性并延长生存期。
GSK2801是一种选择性的BAZ2A/BAZ2B溴结构域抑制剂,对BAZ2A的Kd值为136 nM,对BAZ2B为257 nM,对BRD4的选择性超过50倍。需要强调的是,GSK2801目前仍是实验室用化学探针,而非上市药物,其安全性与人体疗效尚未确立。
临床距离与真正启示
这项研究的价值不在于“又发现了一个靶点”,而在于它重新划定了实体瘤CAR-T抵抗的归因边界。过去,CAR-T在实体瘤中的失败常被归咎于T细胞自身的工程化缺陷或抗原逃逸。这项研究提示,肿瘤细胞可以通过表观遗传编程,主动改造微环境的代谢组成,在免疫细胞“开打”之前就将其缴械。
对于临床医生而言,这意味着联合策略的思路需要调整:不一定要直接改造T细胞,也可以先“清洁战场”,用表观遗传或代谢干预降低微环境中的免疫抑制性脂质,再让CAR-T进场。BAZ2A、FASN增强子、CD36摄入、PGC-1α棕榈酰化,每一环都可能成为未来联合治疗的抓手。
当然,从化学探针到临床药物之间仍有漫长距离。但这条“表观—代谢—免疫”轴的确立,至少为实体瘤CAR-T的增效提供了一个此前未被认真对待的方向:下次想让T细胞打胜仗,也许得先管住癌细胞手里的“油壶”。
原文链接:
https://www.nature.com/articles/s43018-026-01267-3
免责声明:本账号分享的内容仅为健康信息科普,不构成任何医疗建议。个人健康问题,请务必咨询执业医师。
编辑 | 晓娟
视频 | 粘洞
审核 | 佼娇 鹏哥
版权声明:
本文版权归医悦汇所有,欢迎转发分享!
其他任何媒体如需转载或引用本网版权所有内容,须获得授权,且在醒目位置处注明 “ 转自:医悦汇 ”。