中国药科大学王广基院士、李昔诺研究员联合诺丁汉大学朱哲英教授梳理cGAS-STING通路的情境依赖及靶向干预策略
发布时间:2026-11-09来源:汇聚南药
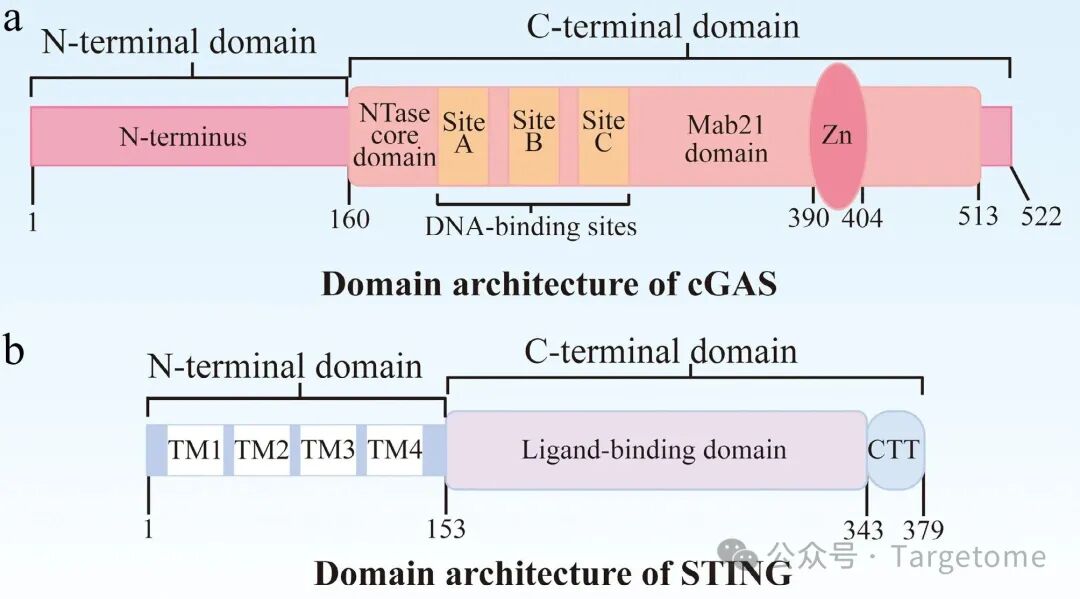
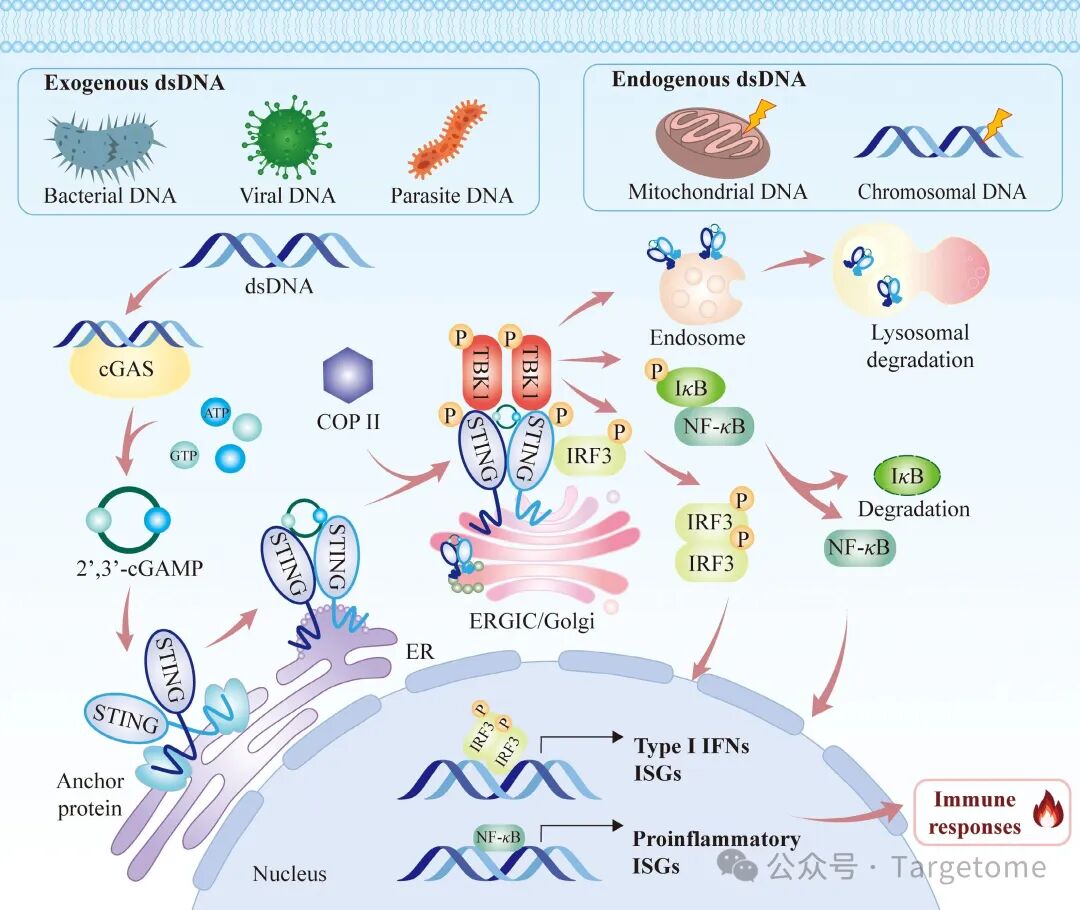
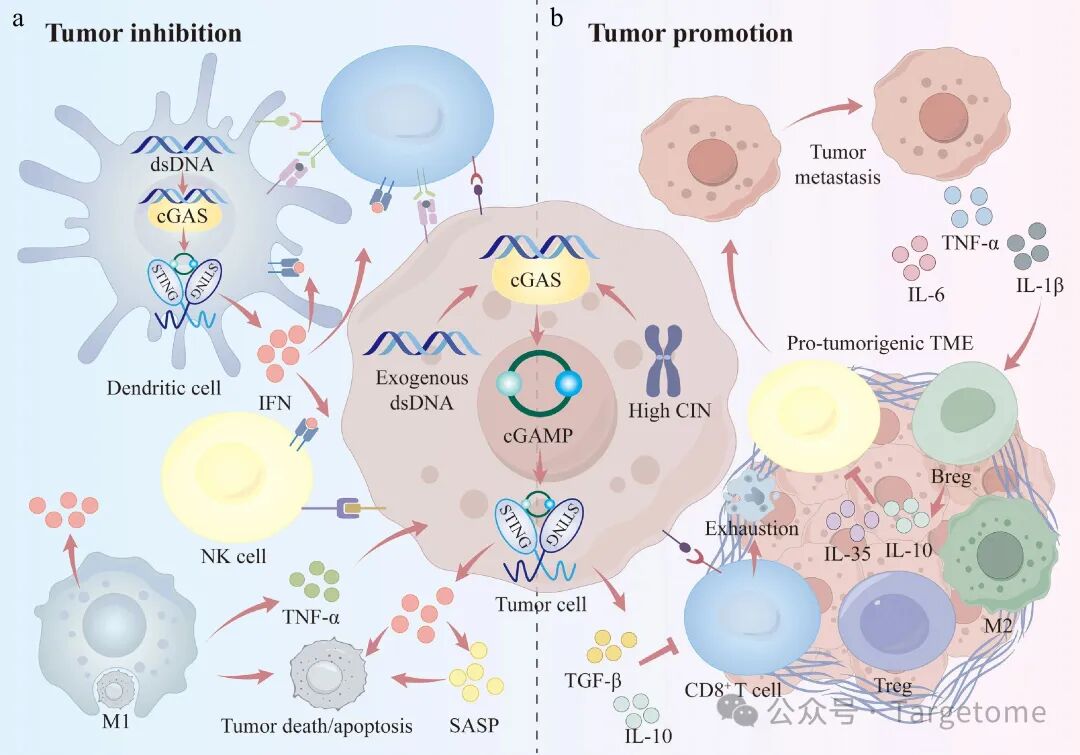
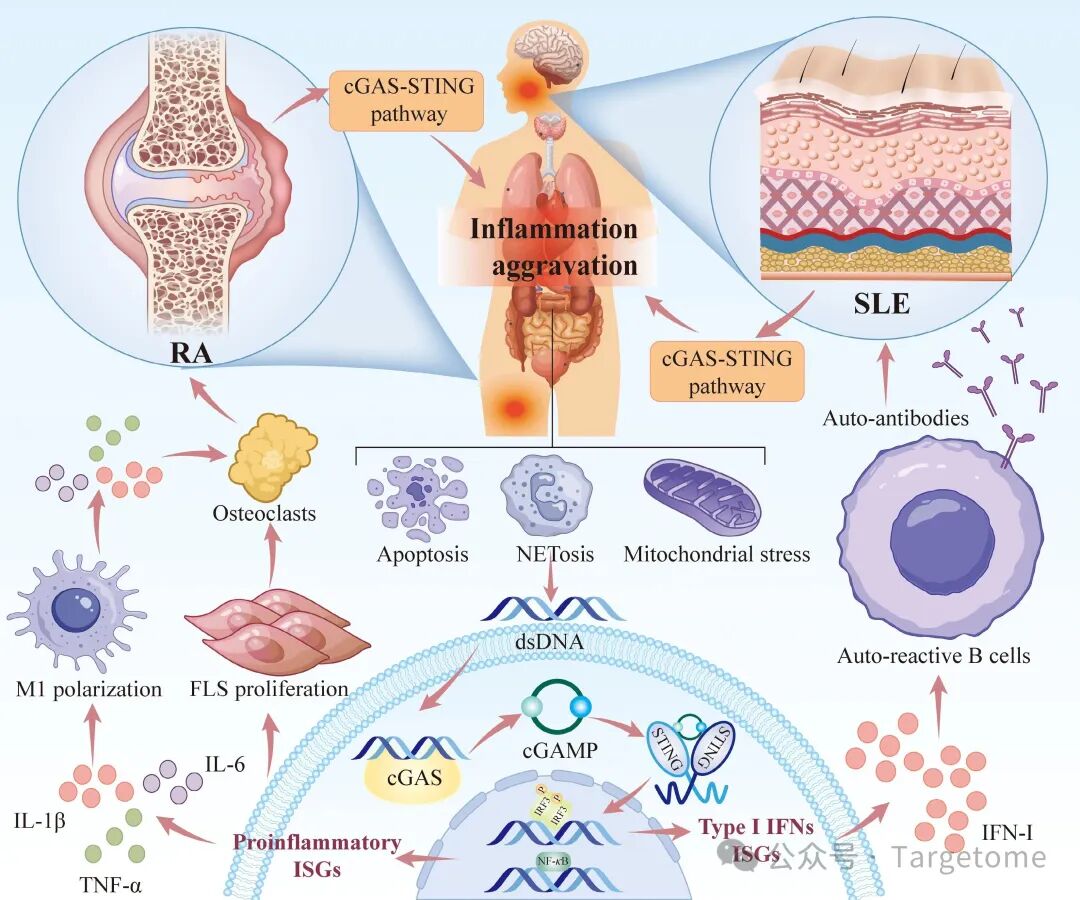
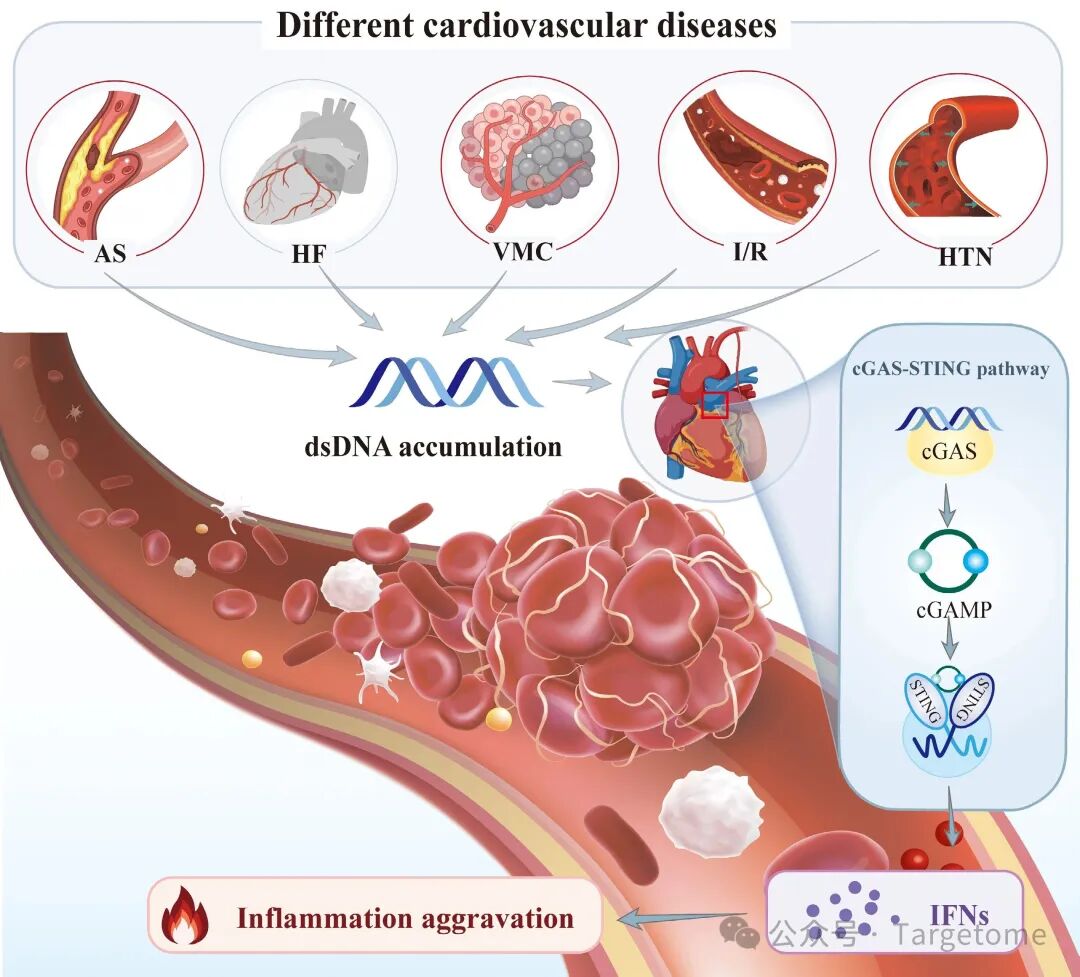
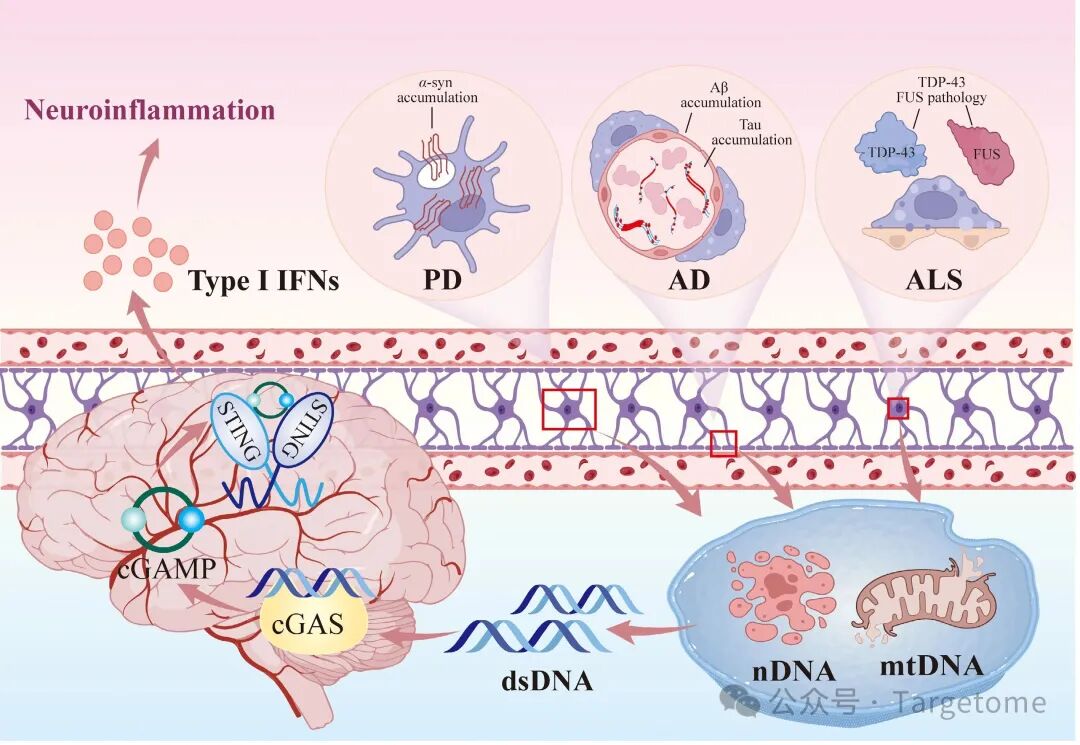
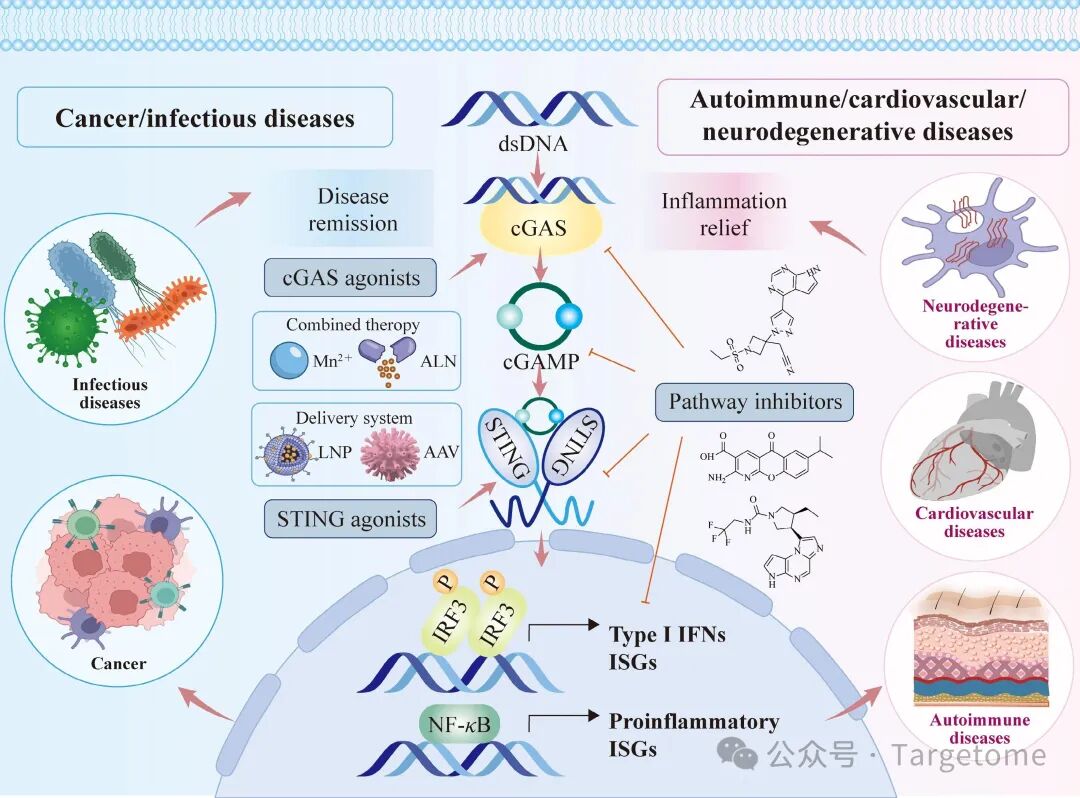
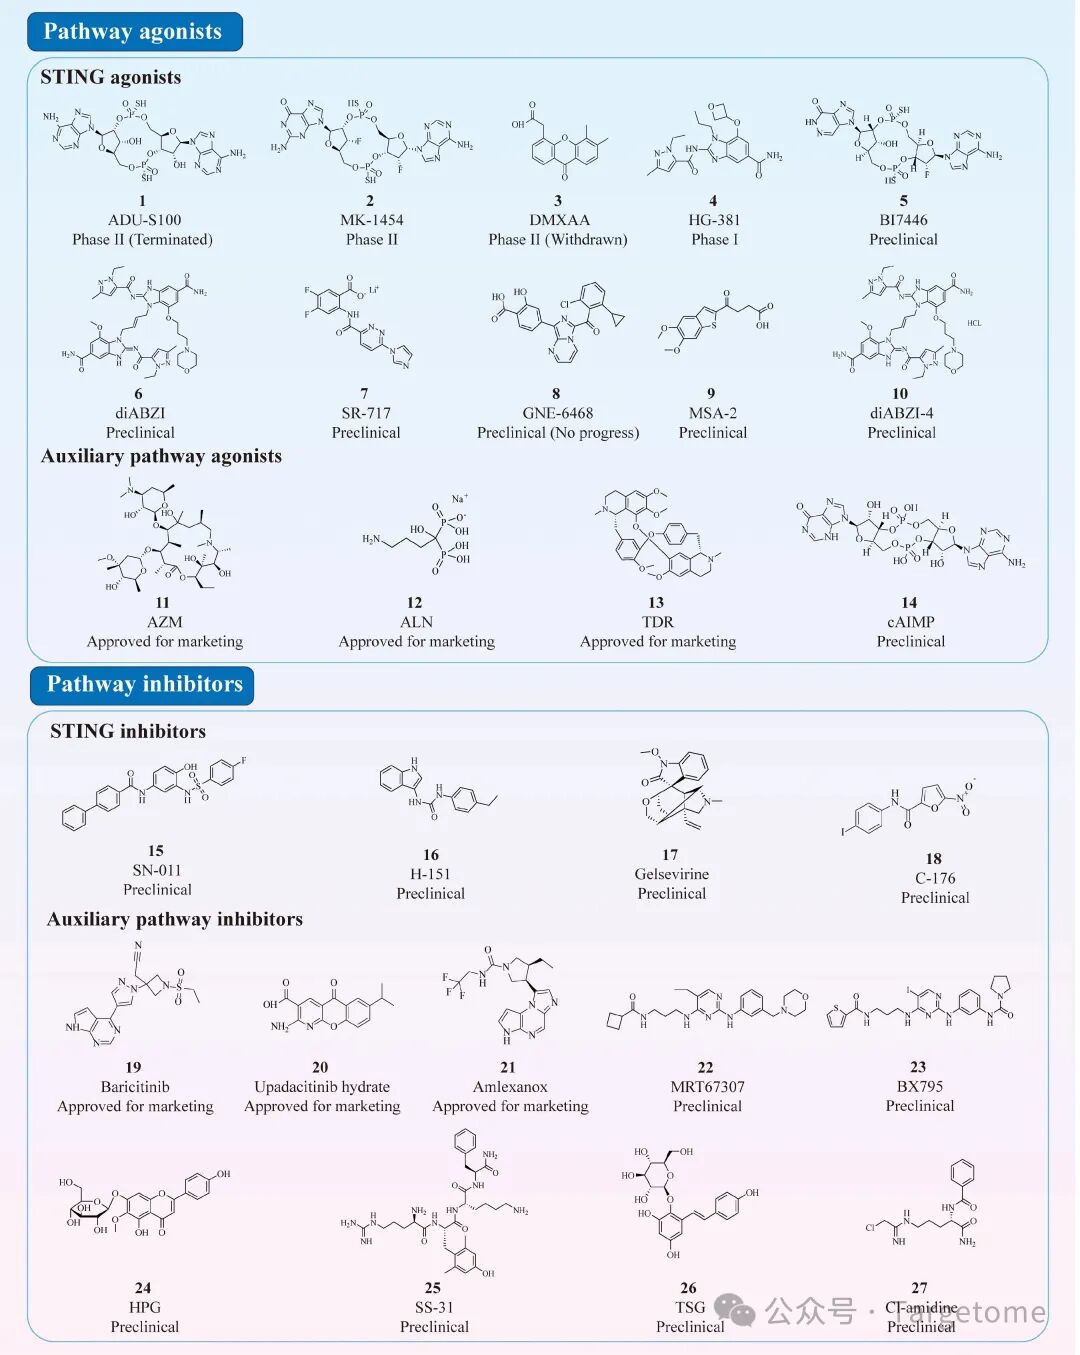
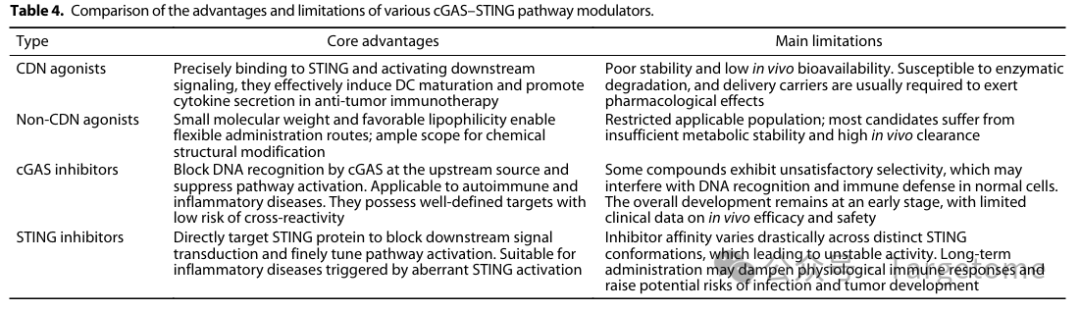
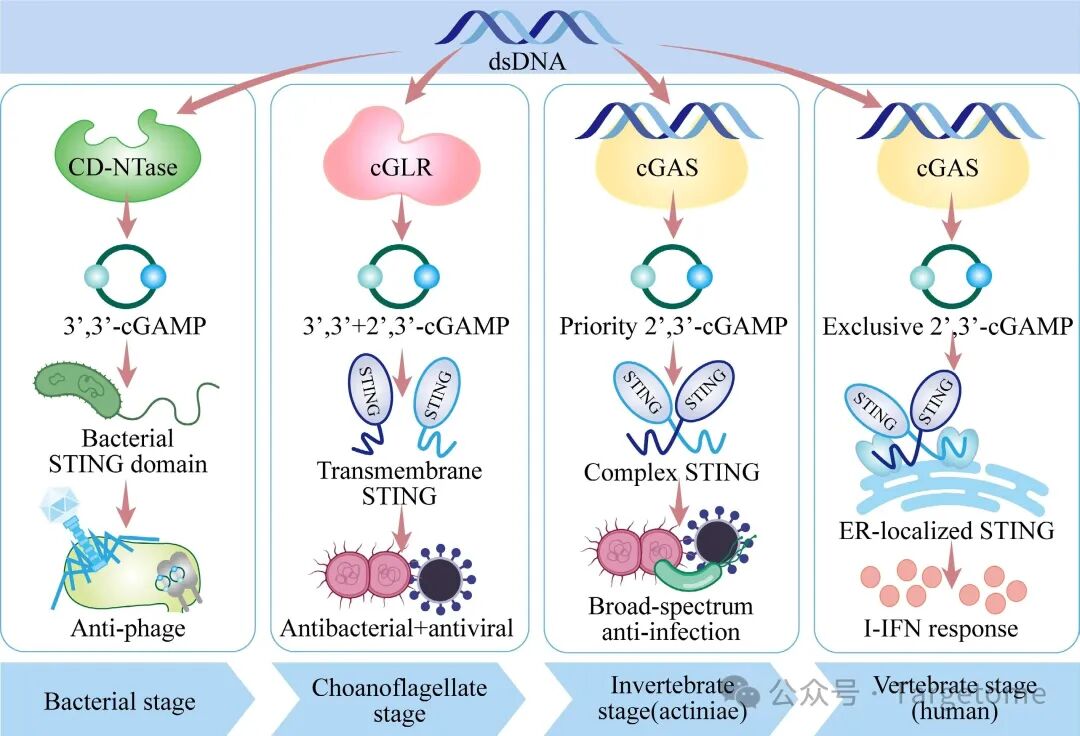
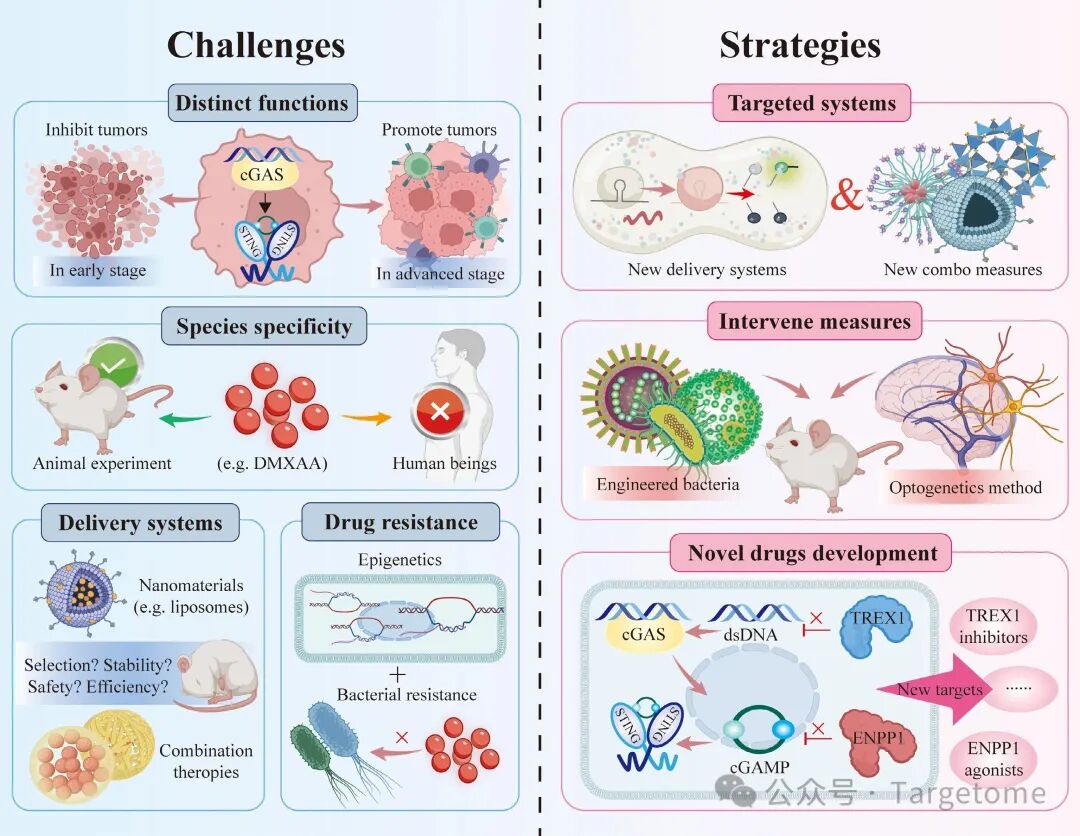
同一个分子通路,为什么在肿瘤里要"踩油门",在自身免疫病里却要"踩刹车"?当治疗思路从"杀病原、杀肿瘤"转向"调节宿主免疫",这个问题就绕不过去。cGAS-STING 通路正是这样一个典型:它既能启动抗感染与抗肿瘤免疫,也会在慢性激活时把组织推向炎症损伤。 中国药科大学王广基院士、李昔诺研究员联合诺丁汉大学朱哲英教授,在 Targetome 发表综述, Context-dependent cGAS–STING signaling drives disease pathogenesis and therapeutic innovation, DOI: 10.48130/targetome-0026-0058. 从结构基础、激活与终止机制出发,逐一梳理这条通路在肿瘤、感染、自身免疫、心血管与神经退行性疾病中的双面角色,并系统总结了激动剂与抑制剂的研发进展、临床转化瓶颈,以及一个颇具启发的视角:细菌的CBASS 抗噬菌体系统与哺乳动物 cGAS-STING 的演化与结构关联。从胞质 DNA 到 I 型干扰素:一条通路的分子骨架 通路的两端是两个蛋白。cGAS 由 N 端内在无序区(IDR)与 C 端催化域(cGASCD)构成,IDR 主要参与二聚化与 DNA 结合,并通过液液相分离(LLPS)增强酶活性;cGASCD 则负责把 ATP 与 GTP 催化成第二信使 2'3'-cGAMP。STING 是内质网跨膜蛋白,N 端四个跨膜螺旋把蛋白锚定在膜上,C 端胞质域包含配体结合域(LBD)与 C 端尾巴(CTT),后者通过 PLPLRT/SD 基序招募 TBK1。图1 cGAS(a)与 STING(b)的结构域组成 激活的起点是胞质双链 DNA,来源既可以是外源的(病毒、细菌、寄生虫),也可以是内源的(凋亡细胞染色体 DNA、线粒体 DNA、核 DNA 片段)。DNA 与 cGAS 催化区结合引发构象变化与二聚化,合成的 cGAMP 扩散至内质网并插入 STING 二聚体的口袋,形成"盖子"样结构;随后 STING 经 COPII 囊泡转运至高尔基体,与 TBK1 组成复合物,磷酸化激活 IRF3 并激活 NF-κB,最终诱导 I 型干扰素与促炎因子表达。 值得注意的是,这条通路并不是"一开到底"。文章专门用一段梳理了终止机制:负调控蛋白结合 STING 或 TBK1 抑制信号传递;磷酸酶介导的去磷酸化构成另一种终止方式;胞内环二核苷酸可被磷酸二酯酶降解,在更上游掐断信号;STING 蛋白本身则主要经泛素-蛋白酶体或自噬-溶酶体途径降解。空间与时间上的严格管控,是这条通路不失控的关键。图2 哺乳动物 cGAS-STING 通路的信号转导 这条通路的"身世"也值得一提。1989 年 Janeway 提出模式识别受体(PRR)理论,为胞质 DNA 感知研究奠基;2008 年 STING 被确认为响应胞质 DNA 产生 I 型干扰素的重要接合蛋白;2013 年陈志坚团队鉴定 cGAS 为双链 DNA 的主要感受器,完整勾勒出 cGAS-cGAMP-STING-TBK1-IRF3 信号链;2014 至 2018 年间,cGAS-DNA 与 cGAMP-STING 复合物晶体结构相继解析,解释了转运、定位、TBK1 招募与 IRF3 磷酸化等基本过程;2019 年以来,多个 STING 激动剂与 cGAS 抑制剂进入肿瘤与自身免疫病的临床研究。 文章给出的答案是阶段依赖与情境依赖。在肿瘤微环境中,通路早期通过增强固有免疫与适应性免疫、诱导细胞衰老与凋亡来抑制肿瘤发生;但到了晚期与转移阶段,染色质不稳定(CIN)驱动的持续激活会转向免疫抑制、慢性炎症与上皮间质转化,促进肿瘤生长与转移。机制上,持续激活使 TBK1-IRF3-IFN-I 轴减弱,转而优先招募并磷酸化 IKK 复合物,放大 NF-κB 介导的促瘤转录。作者据此提出,抑制 IKKβ、TBK1 或阻断 NF-κB p65 核转位,有望在逆转炎症微环境的同时恢复 IRF3 介导的抗肿瘤免疫。图3 cGAS-STING 通路在免疫应答中的抗肿瘤(a)与促肿瘤(b)机制 在感染性疾病中,通路的激活方式甚至带有病原体特异性。胞内菌释放基因组 DNA 激活通路,如结核分枝杆菌的 ESAT-6 可通过 GSDMD 加工与线粒体 DNA 释放激活 cGAS-STING;胞外菌如铜绿假单胞菌与肺炎链球菌直接产生环二核苷酸刺激 STING。病毒方面,DNA 病毒(HSV-1、HBV)直接触发通路,RNA 病毒(流感、登革、SARS-CoV-2)则通过线粒体 DNA 释放或微核形成间接激活;HIV-1 逆转录产生的 cDNA 由 cGAS 在 PQBP1 介导下识别。真菌与寄生虫亦有各自路径,如新型隐球菌的荚膜多糖诱导吞噬体破裂,弓形虫的 GRA15 促进 STING 泛素化与寡聚化。 自身免疫病的逻辑则相反:自身 DNA 异常蓄积、通路基因功能获得性突变、负调控缺陷三者叠加,形成"DNA-cGAS-STING 激活"的恶性循环。中性粒细胞胞外诱捕网(NETosis)与高水平线粒体 DNA 是重要诱因,TREX1 突变导致胞质 DNA 蓄积,去泛素化酶 CYLD 与 USP18 受抑则进一步放大通路活性。图4 常见自身免疫性疾病中 cGAS-STING 通路的激活 心血管与神经系统的证据同样清晰。氧化型低密度脂蛋白诱导内皮细胞释放线粒体 DNA,推动动脉粥样硬化中的炎症与泡沫细胞形成;心肌细胞释放的线粒体 DNA 与巨噬细胞吞噬的细胞碎片参与心肌梗死与缺血再灌注损伤,促发心肌纤维化;机械应力经 IRF3-YAP 信号参与高血压血管重塑;柯萨奇病毒 B3 心肌炎中受损 DNA 同样激活通路。神经退行性疾病中,Aβ 沉积与 Tau 过度磷酸化、α-突触核蛋白聚集、TDP-43 与 FUS 突变分别造成线粒体或核 DNA 泄漏,驱动小胶质细胞与星形胶质细胞活化。文章还提到,微生物-肠-脑轴紊乱也可能通过 DNA 释放加重神经炎症,但机制仍待阐明。图5 cGAS-STING 通路在不同心血管疾病中的作用 在代谢与呼吸系统疾病中,通路的作用更显微妙。STING 活性与 2 型糖尿病中的 β 细胞功能及血糖稳态相关;气道炎症中上皮细胞释放 DNA 激活通路,但 Th2 细胞因子反而抑制气道上皮 STING 活性,提示轻度激活有时可能缓解炎症。这类"反直觉"的证据,恰是全文强调情境依赖的最好注脚。 基于上述差异,作者用一张表把"何时激活、何时抑制"落到了可操作的层面:急性、局限的激活多用于抗肿瘤与抗感染;持续、广泛的异常信号则需要抑制,用于自身免疫、慢性炎症与组织损伤。 判断依据包括核心参与细胞、组织分布范围与通路激活状态。表1 cGAS-STING 与其他天然免疫靶点(RIG-I、TLRs、NLRP3、AIM2)的比较表2 何时激活、何时抑制 cGAS-STING 通路 抗肿瘤方向以激动剂为主,按化学结构分为环二核苷酸(CDN)与非 CDN 小分子。ADU-S100、MK-1454 与 BI 7446 是代表性 CDN 类药物,在动物模型中抗肿瘤效果明确,但临床单药表现不佳:早期临床试验中 ADU-S100 的客观缓解率(ORR)低于 5%,MK-1454 单药 ORR 接近 0。原因并不神秘,膜通透性差、血浆半衰期短、易被外核苷酸焦磷酸酶/磷酸二酯酶 1(ENPP1)降解,共同压缩了成药空间;安全性上 ADU-S100 常见发热、乏力与皮疹,MK-1454 则易出现骨髓抑制与胃肠道反应。 联合与递送是当前的主要解法。脂质体、纳米粒与光动力功能化递送系统可提升胞内递送效率、延长半衰期并抵抗降解;与抗 PD-1 抗体、IL-15 或化疗联用则可进一步增强微环境内的免疫反应。但文章也直言联合方案的代价:ADU-S100 联合 PD-1 抑制剂 spartalizumab 时,约 66% 的患者出现全身炎症与免疫相关不良事件;MK-1454 联合帕博利珠单抗的 I/II 期方案主要源自临床前协同数据,缺乏针对微环境异质性与药代相互作用的系统验证。 非 CDN 小分子因口服生物利用度高、种属交叉活性好而成为近年热点。首个进入临床的 DMXAA 因对人 STING 活性远低于小鼠 STING,如今更多作为机制研究工具;GSK 的 diABZI 是首个静脉给药的非 CDN 激动剂;SR-717 在提升 CD8⁺ T 细胞与 NK 细胞水平抑瘤之外,还经 STING-IL-6 通路发挥辐射保护作用;清华大学团队发现的 GNE-6468 可激活 STING 介导的固有免疫与非经典自噬;口服分子 MSA-2 则通过与免疫检查点抑制剂、Mn²⁺ 或脂质纳米粒联用,改善单药局限。 文章对两类分子的物化差异作了务实比较:CDN 类因多个磷酸基团而过度亲水、分子量偏大,穿膜与跨膜转运受限;非 CDN 类分子量小、极性低,细胞通透性与给药便利性更好,但水溶性差易聚集、组织分布特异性不足,存在全身免疫失控风险。加上种属差异与患者个体异质性,以及全身给药难以在肿瘤组织实现靶向富集,都是临床试验中止的现实原因。图7 不同疾病情境下靶向 cGAS-STING 通路的药物开发思路图8 靶向 cGAS-STING 通路的代表性药物与小分子调节剂化学结构抑制剂的三条战线:cGAS、STING 与下游节点 自身免疫病方向以抑制剂为主,干预层次可分为三层。cGAS 层面,现有设计多针对结构域以阻断 DNA 结合或酶活性;Zhao 等设计的 XL 蛋白凝聚抑制剂锁定 cGAS 活性环的闭合构象,在细胞与动物模型中均显示出跨物种抑制效果,为自身免疫病提供了新思路。STING 层面,既可通过非共价或共价方式直接作用于蛋白,也可干预下游信号组分:gelsevirine 通过竞争性占据 CDN 结合口袋抑制 STING 活性,H-151 与 C-176 则以共价方式结合 Cys91 残基使 STING 失活;下游节点上,MRT67307 与 BX795 作为 TBK1 抑制剂阻断 STING-TBK1-IRF3 通路、降低 IFN-β 分泌。 文章还提示了两个较少被讨论的方向。其一是E3 泛素连接酶 RAD18,它通过选择性靶向磷酸化 IRF3 终止 IFNB1 转录,作者据此设想:可围绕 RAD18 与磷酸化 IRF3 的互作界面寻找可成药口袋,开发稳定该结合的分子胶,或设计靶向蛋白降解剂招募 E3 连接酶降解活化态 IRF3。其二是 cGAMP 代谢,体内 2'3'-cGAMP 主要由 ENPP1 降解,ENPP1 可感知胞质线粒体 DNA 升高并引起 SLE 患者 T 细胞代谢重编程,提示其作为治疗靶点的可能,但目前针对 cGAMP 降解酶的激动剂研究仍然有限。 心血管疾病方向上,H-151 通过阻断 STING 缓解 GPX4 相关的铁死亡、减轻心肌缺血再灌注损伤并改善心功能;天然黄酮 homoplantaginin 则通过抑制 DRP1 介导的线粒体过度分裂与 VDAC1 寡聚化,缓解血管内皮衰老。但心血管系统细胞类型多样,各细胞中通路角色并不相同,现有药物缺乏细胞特异性,全身抑制可能带来脱靶效应,过度抑制还会削弱宿主抗感染能力,因此选择性递送被列为优先方向。 神经系统方向的核心障碍是血脑屏障。超过 98% 的小分子药物与绝大多数大分子药物难以透过 BBB,H-151 与重组 cGAMP 都在此列。已有突破多来自递送创新:小肽 SS-31 通过 PHB2 介导的线粒体自噬抑制线粒体 DNA 释放,并调节 M1 型小胶质细胞极化,改善术后认知功能障碍;何首乌活性成分 TSG 降低 cGAS 与 STING 蛋白水平、减少皮层与海马小胶质细胞过度活化;PAD4 抑制剂 Cl-amidine 经自组装脂质体纳米载体(C-Lipo/CA)给药,在大脑中动脉闭塞模型中抑制 NETs 并降低通路激活,且不破坏 BBB 完整性;ASSIST 策略则把 STING 抑制剂封装进可透过 BBB 的聚合物胶囊,借助多价相互作用瓦解 Aβ 斑块并促进小胶质细胞吞噬。表3 已进入临床试验的代表性 cGAS-STING 通路药物表4 各类 cGAS-STING 通路调节剂的优势与局限 综述中最具想象力的一节,是把哺乳动物通路与细菌的CBASS(基于环寡核苷酸的抗噬菌体信号系统)并置讨论。从领鞭虫、无脊椎后生动物到脊椎动物,cGAS-STING 可能正是从细菌这套"感染感知、信号生成、效应蛋白激活、细胞死亡"的防御机制演化而来。 结构上的差异恰好提供了设计线索:细菌环寡核苷酸(cOA)呈闭合环状拓扑,无游离 5' 或 3' 末端,可有效规避外切酶降解;其核苷骨架修饰与磷酸二酯键连接方式也与哺乳动物内源环核苷酸明显不同,不易被 ENPP1 等酶识别水解。若借鉴 cOA 的环状骨架,结合非天然核苷修饰、磷酸基团空间构象优化或碱基排布模拟,有望构建抗酶解能力更强的环状分子,延长体内半衰期、改善生物利用度。近期 Yina Gao 团队还发现,CBASS 效应蛋白 3TM-SAVED 在 2'3'-cGAMP 作用下可纵向剪切磷脂双分子层、改变膜通透性从而阻断噬菌体感染,为药物设计提供了另一种视角。 在抗菌层面,作者提出一个双向设想:CBASS 激动剂可通过延长 cOA 信号或直接激活效应蛋白(如 NucC)促使细菌"自杀"或阻断感染;CBASS 抑制剂则可能与噬菌体联用、提高噬菌体感染效率,为多重耐药菌提供新选项。随着高通量筛选、结构生物学与递送系统的进步,这条线索有望与 cGAS-STING 靶向药物并行发展。图9 从细菌 CBASS 系统到哺乳动物 cGAS-STING 通路的演化路径图10 靶向 cGAS-STING 通路的药物面临的挑战与未来策略 这篇综述的价值,不在于给出"该激活还是该抑制"的统一答案,而在于把这句判断拆成了可检验的条件:通路的作用取决于细胞类型、组织范围、激活的持续时间与强度。急性而局限的激活倾向保护,持续而广泛的激活倾向损伤。 围绕这一逻辑,作者把激动剂、抑制剂、递送系统与联用策略放回具体疾病情境中评估,而不是单看体外活性。 边界也写得清楚。肿瘤方向,CDN 类药物单药 ORR 低、联合方案安全性代价明显,多数数据仍停留在早期临床;自身免疫方向,cGAS 抑制剂整体仍处早期,体内有效性与安全性数据有限;神经方向受 BBB 与靶点特异性双重制约。文章还点出几个尚未解决的问题:DMXAA 式的种属差异如何在前临床阶段被识别,cGAS-STING 与 NF-κB、MAPK 通路的交互如何影响联合方案优化,肿瘤细胞通过 DNA 甲基化沉默 STING 造成的表观耐药如何绕开,以及递送系统自身的制备复杂度、成本与稳定性。 对做免疫调节药物的人,一个可以带走的问题是:当"激动"与"抑制"都能治病时,真正的变量是时空。若能把给药时机、局部浓度与通路激活状态做成可实时读出的指标,例如借助液体活检、单细胞测序与人工智能影像追踪疾病微环境,那么"给谁、何时给、给多少"或许就不再只能靠经验判断。这条路还很长,但方向已经清晰。 本研究得到深圳市医疗卫生三名工程、细胞生态海河实验室创新基金、中央高校基本科研业务费和中国科协青年人才托举工程等资助。王广基,中国工程院院士,中国药科大学教授、博士生导师,多靶标天然药物全国重点实验室学术带头人。曾任中国药科大学副校长,现任中国药科大学学术委员会主席、江苏省科学技术协会副主席、江苏省药物代谢动力学重点实验室主任、国家中医药管理局中药复方药代动力学重点实验室主任,兼任中国药学会应用药理专业委员会名誉主任委员、中国药理学会制药工业专业委员会主任委员、江苏省药理学会理事长。长期从事药物代谢动力学研究,为"863"重大专项临床前药代动力学关键技术及平台研究全国牵头人,创建"靶细胞药代动力学-药效学结合研究"新理论及新模型;获国家科学技术进步二等奖 4 项、部省级科技进步一等奖 4 项、2012 年何梁何利基金科学与技术进步奖、2023 年全国创新争先奖牌。李昔诺,中国药科大学兴药研究员。依托多靶标天然药物全国重点实验室,以药理学为核心,融合人工智能、临床医学和药物化学等交叉学科视角,从全新维度解析疾病发生发展的分子机制,挖掘创新药物作用靶点和关键生物分子事件,并重点致力于新型药物的开发和转化研究。当前重点聚焦于以下研究方向:(1)基于人工智能技术的抗老年痴呆与衰老药物发现;(2)面向难成药靶点的核酸药物开发。近五年,以第一作者及通讯作者(含共同)发表十余篇SCI论文;申请国家专利11项,PCT专利7项;入选第十届中国科协青年人才托举工程项目(2024),江苏省青年人才托举工程项目(2024)。朱哲英,英国诺丁汉大学药学院教授,长期深耕药理学、先进药物递送、阿尔茨海默病创新药物研发及基因治疗等领域,致力于构建贯通“新靶点发现与验证 - 疾病机制解析 - 候选药物开发 - 递送系统优化 - 临床前评价”的一体化研究体系。其研究重点涵盖阿尔茨海默病疾病修饰治疗、新型基因治疗策略、先进药物递送技术及临床前药效评价模型。当前,团队正综合运用人工智能、多组学与分子生物学技术,系统解析人类衰老及相关疾病的分子基础,探索面向脑、皮肤等组织的精准抗衰老干预策略;同时聚焦神经再生、神经炎症、脑卒中与阿尔茨海默病的关键病理机制,并运用蛋白降解靶向嵌合体(PROTAC)等前沿技术,推动新型治疗靶点和候选药物的发现与转化。- https://doi.org/10.48130/targetome-0026-0058
- https://www.maxapress.com/targetome
- https://mc03.manuscriptcentral.com/targetome
信息来源:Targetome
“汇聚南药”公众号所转载文章来源于其他公众号平台,主要目的在于分享行业相关知识,传递当前最新资讯。图片、文章版权均属于原作者所有,如有侵权,请在留言栏及时告知,我们会在24小时内删除相关信息。
本平台不对转载文章的观点负责,文章所包含内容的准确性、可靠性或完整性提供任何明示暗示的保证。
转载说明:本文系转载内容,版权归原作者及原出处所有。转载目的在于传递更多行业信息,文章观点仅代表原作者本人,与本平台立场无关。若涉及作品版权问题,请原作者或相关权利人及时与本平台联系,我们将在第一时间核实后移除相关内容。

 五度妙笔
 企业透视镜
 API商城

 数据库